
Мышечные ткани - сократимые структуры, участвующие в выполнении функции движения - наиболее характерной функции животного организма. Двигательные процессы многообразны и специфичны для различных уровней организации (субклеточного, клеточного, тканевого, органного и организменного).
Источниками развития мышечных тканей и миоидных клеток позвоночных являются участки мезодермы, эктодермы и мезенхима. По классификации Н.Г. Хлопина все мышечные ткани делятся на пять самостоятельных типов:
1) соматического типа;
2) целомического типа;
3) гладкую внутренностей и сосудов;
4) нейрального происхождения;
5) миоэпителиальные элементы.
Поперечнополосатая мышечная ткань является ведущей тканью скелетных мышц (соматического, у позвоночных скелетного типа), а также входит в состав висцеральных (несердечных) исчерченных мышц пищевода, наружного сжимателя прямой кишки, наружного сжимателя мочеиспускательного канала, а также лимфатических сердец земноводных и электрических органов у рыб. В коже животных также присутствуют волокна поперечнополосатой мышечной ткани.
Гистогенез скелетной мышечной ткани позвоночных и человека - это процесс преобразования структур от исходной клеточной формы организации до симпластической, представляющей, по мнению А.А. Заварзина, высшую ступень дифференцировки определенной гистологической структуры. Вся скелетная мышечная ткань развивается из единого источника - миотомов мезодермы. Миотомы мезодермы представляют собой дорсомедиальную часть сомита дорсальной мезодермы (см. главу 5). Стволовые клетки миотомов (промиобласты) последовательно проходят следующие стадии: миобластическую, миосимпластическую, мышечных трубочек (миотуб), молодых и зрелых мышечных волокон (рис. 9.1). Промиобласты в результате дивергентной дифференцировки дают начало симпластическому и клеточному (миосателлитоциты) дифферонам.
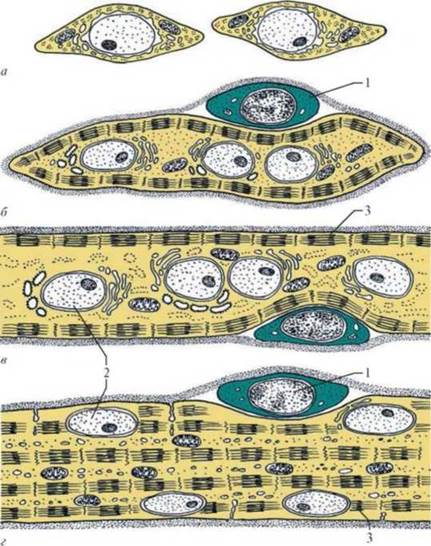
Рис. 9.1. Гистогенез скелетной мышечной ткани: а - миобласты; б - миосимпласт; в - мышечная трубочка; г - зрелое мышечное волокно: 1 - миосателлитоцит; 2 - ядро симпласта; 3 - миофибриллы (по А.А. Клишову, 1989)
Развитие этих дифферонов протекает в единстве, в результате чего формируется клеточно- симпластическая система - мышечное волокно. Симпластическая часть волокна развивается в результате слияния одноядерных миобластов на стадии закладки мышцы. Это клетки со слабо базофильной цитоплазмой, немногочисленными органеллами.
Рецепторно-трансдукторная система миобластов позволяет узнавать другие миобласты, выстраиваться в цепочку, сливаться и формировать первые миосимпласты (см. рис. 9.1). В дальнейшем в периферической части миосимпласта синтезируются актиновые и миозиновые филаменты, которые объединяются в поперечно-исчерченные миофибриллы. Миосимпласт удлиняется, дифференцируется в мышечную трубочку. В последней продолжается синтез сократительных белков, увеличивается число миофибрилл, органелл. Кроме того, миосателлитоциты, которые прилежат к покровной системе миосимпласта или мышечной трубочки, интенсивно размножаются и после митоза одна из дочерних клеток сливается с симпластической частью формирующегося мышечного волокна. Этим механизмом обеспечивается оптимальное ядерно-саркоплазматическое отношение для контроля синтеза белков. Развивающаяся базальная мембрана покрывает снаружи как миосателлитоциты, так и симпластическую часть волокна.
Так две структуры объединяются в единую структурно-функциональную единицу, состоящую из специализированной на сокращении симпластической части и камбиальной - клеточной.
В дальнейшем в связи с миофибриллогенезом ядра постепенно перемещаются на периферию, а миофибриллы занимают центральную часть симпласта. Возникает молодое мышечное волокно. При этом уменьшается пролиферативная активность миосателлитоцитов, изменяется их структура - ядро уплотняется за счет появления гетерохроматина, цитоплазма обедняется органеллами, клетка уплощается и переходит в состояние пролиферативного покоя. Таким образом, в составе мышечного волокна одни ядра находятся в саркоплазме симпластической части волокна, а другие - принадлежат миосателлитоцитам. Последние выявляются лишь при электронной микроскопии (рис. 9.2).

Рис. 9.2. Строение мышечного волокна: а - ядро симпласта, находится в саркоплазме; б - миосателлитоцит, отделен от симпласта клеточными мембранами (стрелка), но располагается под базальной мембраной (Бм) волокна; электронные микрофотографии (увеличение 6000)
Стадия зрелого мышечного волокна протекает в связи с иннервацией и характеризуется приобретением определенных гистохимических и физиологических свойств. Появляются медленные оксидативные (красные), быстрые гликолитические (белые, быстро утомляющиеся), оксидативно-гликолитические (красные, быстрые, более стойкие к утомлению) мышечные волокна (см. главу 21).
Строение. Структурно-функциональной единицей поперечнополосатой скелетной мышечной ткани является мышечное волокно, или клеточно-симпластическая тканевая единица (рис. 9.3).
Каждая миофибрилла состоит из большого числа правильно чередующихся темных и светлых полос (дисков). В поляризованном свете темные диски обнаруживают двойное лучепреломление, поэтому называются анизотропными дисками (полосами А). Светлые диски таким свойством не обладают и называются изотропными (полосами I). Каждая миофибрилла образована пучком параллельно идущих миофиламентов. Анизотропные диски состоят из толстых и тонких миофиламентов, а изотропные - только из тонких. Тонкие филаменты (5-8 нм) образованы белками актином, тропомиозином, тропонином, а толстые (10-12 нм) - миозином, белками Ми Н-полос и другими. Тонкие филаменты размещаются между толстыми, образуя гексагональное расположение.
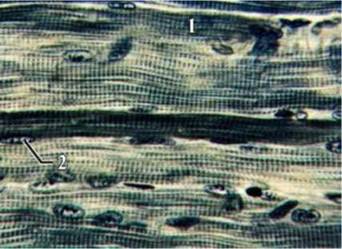
Рис. 9.3. Поперечнополосатое скелетное мышечное волокно: 1 - миофибриллы; 2 - ядро; микрофотография, окраска железным гематоксилином по Г ейденгайну (увеличение большое)
Структурно-функциональной единицей миофибриллы является саркомер. Условная формула саркомера - 1/2 I-диска + А-диск + 1/2 I-диска. Линия сшивки соседних саркомеров соответствует линии Z (телофрагме), которая состоит из белков альфа-актинина, десмина, виментина и др. (рис. 9.4). У позвоночных длина саркомера равна 2-3 мкм.

Рис. 9.4. Ультраструктура миофибрилл: а - просвечивающая электронная микроскопия (увеличение 12 000): А - анизотропные диски; I - изотропные диски; Z - линия Z, или телофрагма; б - сканирующая электронная микроскопия: комплексы белков цитоскелета (стрелки) в области телофрагмы (по Ю.А. Хорошкову)
Средняя часть миозинового диска, куда не доходят актиновые миофиламенты, более светлая и называется полосой Н. Ее пересекает мезофрагма, скрепляющая миозиновые нити посередине саркомера. В подмембранном слое симпласта обнаружены белки винкулин и спектрин, входящие в состав скелета симпласта.
Компоненты метаболической среды симпласта хорошо выражены. В гистогенезе с возрастанием степени зрелости симпластов наблюдается увеличение числа митохондрий, которые ориентируются по бокам линии Z между миофибриллами и под сарколеммой. Гранулы гликогена, липидные капли формируют скопления между миофибриллами и под сарколеммой. Содержание миоглобина (связывающий кислород пигмент) варьирует в зависимости от образа жизни животного. Рибосомы представлены в виде полисом. Небольшое число лизосом принимает участие в процессах внутрисимпластической регенерации. Клеточный центр в симпласте отсутствует.
Саркоплазматическая сеть и Т-трубочки развиваются параллельно (рис. 9.5). Последние - это инвагинации плазмолеммы, которые опоясывают каждый саркомер. В продольном направлении вокруг каждой миофибриллы идут канальцы саркоплазматической сети. Так формируются продольная и поперечная системы, которые на срезах видны как триады. Триада - это комплекс, состоящий из поперечной трубочки и профилей двух цистерн саркоплазматической сети, расположенных симметрично по обе стороны от Т-трубочки. В цистернах саркоплазматической сети накапливаются ионы кальция, необходимые для сокращения миофибрилл.

Рис. 9.5. Схема строения и взаиморасположения миофибрилл, саркоплазматической сети и Т-системы в поперечнополосатом мышечном волокне: 1 - миофибриллы; 2 - саркоплазматическая сеть; 3 - поперечная трубочка; 4 - триада; 5 - толстые миофиламенты; 6 - тонкие миофиламенты; 7 - телофрагма; 8 - мезофрагма
В позднем онтогенезе происходит ряд ультраструктурных изменений в клетках и симпластах. Наиболее значимы утолщение базальной мембраны, дезорганизация миофибрилл и линии Z, возникновение скоплений митохондрий под сарколеммой, отделение миосателлитоцитов от симпласта и переход их в интерстициальное пространство. Иннервация мышечных волокон осуществляется двигательными нейронами передних рогов спинного мозга, которые формируют нервно-мышечные синапсы примерно в центральной части волокна (см. главу 19).
Регенерация. Для успешной регенерации мышечной ткани необходимо сохранение напряжения мышцы, восстановление кровоснабжения и нервной связи. Основным источником регенерации являются миосателлитоциты. После активации последних происходит их митотическое деление, возникают миобласты, которые претерпевают дифференцировку, сливаются друг с другом и формируют симпласты. Развитие симпластов продолжается с участием размножающихся миосателлитоцитов, часть которых сливается с растущими симпластами. Так формируются новые клеточно-симпластические гистологические элементы - мышечные волокна.
Гистогенез. Источники развития сердечной мышечной ткани находятся в прекардиальной мезодерме. В гистогенезе возникают парные складчатые утолщения висцерального листка спланхнотома - миоэпикардиальные пластинки, содержащие стволовые клетки сердечной мышечной ткани (см. главу 5). Последние путем дивергентной дифференцировки дают начало следующим клеточным дифферонам: рабочим, ритмзадающим (пейсмекерным), проводящим и секреторным кардиомиоцитам.
Исходные клетки сердечной мышечной ткани - кардиомиобласты - характеризуются рядом признаков: клетки уплощены, содержат крупное ядро, светлую цитоплазму, бедную рибосомами и митохондриями. В дальнейшем происходит развитие комплекса Гольджи, гранулярной эндоплазматической сети. В кардиомиобластах обнаруживаются фибриллярные структуры, но миофибрилл нет (рис. 9.6).
Клетки обладают высоким пролиферативным потенциалом. После ряда митотических циклов кардиомиобласты дифференцируются в кардиомиоциты, в которых начинается саркомерогенез (рис. 9.7).
В цитоплазме кардиомиоцитов увеличивается число полисом, канальцев гранулярной эндоплазматической сети, накапливаются гранулы гликогена, возрастает объем актомиозинового комплекса. Кардиомиоциты сокращаются, но не теряют способность к дальнейшей пролиферации и дифференцировке. Развитие сократительного аппарата в позднем эмбриональном и постнатальном периодах происходит путем надставки новых саркомеров и наслоения вновь синтезированных миофиламентов. Дифференцировка кардиомиоцитов сопровождается увеличением числа митохондрий, распределением их у полюсов ядер и между миофибриллами и протекает параллельно со специализацией контактирующих поверхностей клеток. Кардиомиоциты путем контактов «конец-в-конец», «конец-в-бок» формируют клеточные комплексы - сердечные мышечные волокна, и в целом ткань представляет собой сетевидную структуру (рис. 9.8).
Строение. Структурно-функциональные единицы волокон - кардио-миоциты - это клетки, имеющие вытянутую прямоугольную форму. Длина рабочих кардиомиоцитов составляет 50-120 мкм, а ширина - 15-20 мкм. Одно-два ядра располагаются в центре клетки. Периферическую часть цитоплазмы кардиомиоцитов занимают поперечно-исчерченные миофибриллы, аналогичные таковым в симпластах скелетно-мышечного волокна (рис. 9.9). Однако каналы саркоплазматической сети и Т-системы менее отчетливо выражены. Кардиомиоциты отличаются большим количеством митохондрий, расположенных тесными рядами между миофибриллами. Снаружи миоциты покрыты сарколеммой, в составе которой выделяются плазмолемма и базальная мембрана. Характерной особенностью ткани является наличие вставочных дисков на границе между контактирующими кардиомиоцитами (рис. 9.10). Вставочные диски пересекают волокно в виде волнистой или ступенчатой линии и включают межклеточные контакты от простых, по типу десмосом, и до щелевых (нексусов).
Прекардиальная мезодерма
↓
Кардиомиобласты
↓

Рис. 9.6. Схема эмбрионального развития сердечной мышечной ткани (по П.П. Румянцеву, 1982, с изменениями)
Высокоспециализированные межклеточные контакты более многочисленны по ходу вставочных дисков (рис. 9.11).
Гораздо реже контакты выявляются в участках смыкания латеральных поверхностей, где формируются анастомозы кардиомиоцитов.

Рис. 9.7. Ультраструктура кардиомиоцита: 1 - сарколемма; 2 - миофибрилла; 3 - митохондрия; электронная микрофотография (увеличение 12 000) (по П.А. Хлопонину)

Рис. 9.8. Строение сердечной мышечной ткани: объединенные в многоклеточные комплексы (сердечные мышечные волокна) кардиомиоциты; микрофотография, окраска гематоксилином и эозином (увеличение малое)

Рис. 9.9. Схема ультраструктуры сократительного кардиомиоцита: 1 - сарколемма; 2 - миофибрилла; 3 - митохондрия; 4 - поперечная трубочка; 5 - агранулярная эндоплазматическая сеть; 6 - лизосома; 7 - вставочный диск; 8 - контакт по типу щелевого вставочного диска; 9 - зона прикрепления миофибрилл; 10 - десмосома; 11 - гранулы гликогена; 12 - мезофрагма; 13 - телофрагма (по Ю.И. Афанасьеву, В.Л. Горячкиной,2011)
Часть кардиомиоцитов на ранних этапах кардиомиогенеза являются сократительно-секреторными. В дальнейшем в результате дивергентной дифференцировки возникают «темные» (сократительные) и «светлые» (проводящие) миоциты, в которых исчезают секреторные гранулы, тогда как в предсердных миоцитах они сохраняются. Так формируется дифферон эндокринных кардиомиоцитов. Эти клетки содержат центрально расположенное ядро с диспергированным хроматином, одним-двумя ядрышками. В цитоплазме хорошо развиты гранулярная эндоплазматическая сеть, диктиосомы комплекса Голь-джи, в тесной связи с элементами которого находятся многочисленные секреторные гранулы диаметром около 2 мкм, содержащие электронно-плотный материал. В дальнейшем секреторные гранулы обнаруживаются под сарколеммой и выделяются в межклеточное пространство путем экзоцитоза. Выделенный пептидный гормон кардиодилатин циркулирует в крови в виде кардионатрина, который вызывает сокращение гладких миоцитов артериол, увеличение почечного кровотока, ускоряет клубочковую фильтрацию и выделение натрия из организма.
Кардиомиоциты проводящей системы гетероморфны. В них слабо развит миофибриллярный аппарат, расположение миофиламентов в составе миофибрилл рыхлое, линии Z имеют неправильную конфигурацию, эндоплазматическая сеть слабо развита, находится на периферии миоцитов, число митохондрий незначительное (см. главу 14). По мере расположения этих кардиомиоцитов в проксимо- дистальном направлении соответственно движению импульсов от синусно-предсердного узла, через предсердно-желудочковый узел, пучок Гиса (предсердно-желудочковый пучок), его ножки и клетки Пуркинье к рабочим миоцитам проводящие кардиомиоциты по своей ультраструктуре приближаются к рабочим кардиомиоцитам.

Рис. 9.10. Строение сердечной мышечной ткани: 1 - ядро кардиомиоцита; 2 - функциональная сеть анастомозирующих сердечно-мышечных волокон; 3 - вставочный диск; микрофотография, окраска железным гематоксилином (увеличение большое)

Рис. 9.11. Вставочные диски между кардиомиоцитами (стрелка); электронная микрофотография (увеличение 20 000) (по Н.В. Ямщикову)
Регенерация. В гистогенезе сердечной мышечной ткани специализированный камбий не возникает, поэтому регенерация ткани протекает на основе внутриклеточных гиперпластических процессов. Вместе с тем для кардиомиоцитов млекопитающих, приматов и человека характерен процесс полиплоидизации. Например, у обезьян ядра до 50% терминально дифференцированных кардиомиоцитов становятся тетра- и октоплоидными. Полиплоидные кардиомиоциты возникают за счет ацитокинетического митоза, что приводит к многоядерности. В условиях патологии сердечно-сосудистой системы человека (ревматизм, врожденные пороки сердца, инфаркт миокарда и др.) важную роль в компенсации повреждений кардиомиоцитов играют внутриклеточная регенерация, полиплоидизация как ядер, так и кардиомиоцитов.
Гистогенез. Филогенетически это молодая разновидность мышечных тканей мезенхимного происхождения, которая делится на два вида: висцеральную и сосудистую. Гладкие миоциты (лейомиоциты) в эмбриональном гистогенезе происходят из общего с фибробластами стволового предшественника в результате дивергентной дифференцировки, которая во многом определяется факторами микроокружения. В развитии гладких миоцитов различают стадии промиобласта, миобласта, дифференцирующихся и дифференцированных миоцитов. На ранних стадиях развития даже электронномикроскопически трудно отличить мезенхимные предшественники фибробластов от гладких миоцитов. В малодифференцированных гладких миоцитах развиты гранулярная эндоплазматическая сеть, комплекс Гольджи. Тонкие филаменты ориентированы вдоль длинной оси клетки. По мере развития размеры клетки и число филаментов в цитоплазме возрастают. Постепенно объем цитоплазмы, занятый сократительными филаментами, увеличивается, расположение их становится все более упорядоченным.
Пролиферативная активность гладких миоцитов в миогенезе постепенно снижается. Это происходит в результате увеличения продолжительности клеточного цикла, выхода клеток из цикла репродукции и перехода в дифференцированное состояние. Однако и в дефинитивном состоянии в гладкой мышечной ткани физиологическая регенерация в виде размножения миоцитов полностью не прекращается. Существуют данные о том, что пролиферация и дифференцировка в большей степени свойственны субпопуляции малых (по размерам) гладких миоцитов.
Строение. Структура дефинитивных гладких миоцитов, входящих в состав внутренних органов и стенки сосудов, имеет много общего, но в то же время характеризуется гетероморфией (рис. 9.12). Так, в стенках вен и артерий обнаруживаются овоидные, веретеновидные, отростчатые миоциты длиной 10-40 мкм, доходящие иногда до 140 мкм. Наибольшей длины гладкие миоциты достигают в стенке матки - до 500 мкм. Диаметр миоцитов колеблется от 2 до 20 мкм.

Рис. 9.12. Строение гладкой мышечной ткани - продольные (1) и поперечные (2) сечения пучков гладких миоцитов; микрофотография, окраска гематоксилином и эозином (увеличение малое)
В зависимости от характера внутриклеточных биосинтетических процессов различают контрактильные и секреторные миоциты. Первые специализированы на функции сокращения, но вместе с тем сохраняют секреторную активность. Плазмолемма расслабленной клетки имеет ровную поверхность, а при сокра-щeнии становится складчатой. В центре клетки имеется палочковидное ядро, которое при сокращении клетки спиралевидно изгибается. Практически все ядра миоцитов содержат диплоидное количество ДНК. Гладкая эндоплазматическая сеть занимает примерно 2-7% объема цитоплазмы, а гранулярная сеть в контрактильных миоцитах выражена плохо.
Митохондрии мелкие, сферические или овоидные, расположены у полюсов ядра (рис. 9.13). Характерной чертой гладких миоцитов является наличие множества впячиваний (кавеол) плазмолеммы, содержащих ионы кальция.
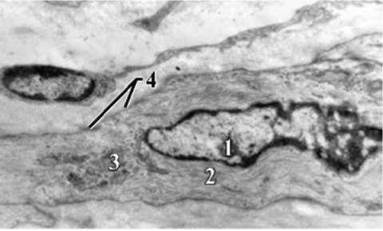
Рис. 9.13. Ультраструктура дифференцирующегося гладкого миоцита: 1 - ядро; 2 - цитоплазма с миофиламентами; 3 - комплекс Гольджи; 4 - кавеолы; электронная микрофотография (увеличение 35 000) (по А.Л. Зашихину, 2011)
Секреторные миоциты (синтетические) по своей ультраструктуре напоминают фибробласты, однако содержат в цитоплазме пучки тонких миофиламентов, расположенные на периферии клетки. В цитоплазме хорошо развиты комплекс Гольджи, гранулярная эндоплазматическая сеть, много митохондрий, гранул гликогена, свободных рибосом и полисом. По степени зрелости такие клетки относят к малодифференцированным.
Сократительный аппарат миоцитов представлен тонкими актиновыми филаментами (гладкомышечным альфа-актином), связанными с тропомиозином (рис. 9.14). Толстые нити состоят из миозина, мономеры которого располагаются вблизи филаментов актина. Соотношение актиновых и миозиновых филаментов в гладком миоците составляет 12:1. Важным компонентом контрактильного аппарата миоцитов являются электронно-плотные структуры - тельца прикрепления, расположенные свободно в цитоплазме (плотные тельца) или тесно связанные с плазмолеммой. Основными белковыми компонентами плотных телец являются а-актинин, актин (немышечный) и кальпонин, что позволяет рассматривать их как функциональный эквивалент линии Z миофибрилл скелетной мышцы.

Рис. 9.14. Схема строения и сокращения гладкого миоцита: а - миоциты в состоянии релаксации; б - сокращенные гладкие миоциты (по А.Л. Зашихину, 2001)
Актиновые филаменты фиксируются на плотных тельцах. Промежуточные филаменты, включающие десмин и виментин, обеспечивают связи между плотными тельцами и плазмолеммой, образуя прикрепительные пластины. Сократительные белки формируют решетчатую структуру, закрепленную по окружности плазмолеммы, поэтому сокращение выражается в укорочении клетки, которая приобретает складчатую форму, тогда как в состоянии покоя клетка вытянута. При возникновении нервного импульса, распространяющегося по плазмолемме миоцита, происходит повышение уровня внутриклеточного Са2+, который поступает в цитоплазму из кавеол, отшнуровывающихся в цитоплазму в виде пузырьков. Высвобождение ионов кальция приводит к каскаду реакций, в результате которого происходит полимеризация миозина и образование перекрестных связей миозина вдоль актиновых филаментов по мере развития мышечного сокращения. Расслабление мышцы возникает при восстановлении концентрации исходного уровня Са2+ внутри клетки путем его перемещения внутрь саркоплазматической сети. При этом образовавшиеся в присутствии ионов кальция связи между актином и миозином нарушаются, актомиозиновый комплекс распадается, гладкий миоцит расслабляется.
Гладкие миоциты синтезируют протеогликаны, гликопротеиды, проколла-ген, проэластин, из которых формируются коллагеновые и эластические волокна и основное вещество межклеточного матрикса.
Взаимодействие миоцитов осуществляется с помощью цитоплазматических мостиков, взаимных впячиваний, нексусов, десмосом или простых участков мембранных контактов клеточных поверхностей.
Регенерация. Гладкая мышечная ткань висцерального и сосудистого видов обладает значительной чувствительностью к воздействию экстремальных факторов. В активированных миоцитах возрастает уровень биосинтетических процессов, морфологическим выражением которых являются синтез сократительных белков, укрупнение и гиперхроматоз ядра, гипертрофия ядрышка, возрастание показателей ядерно-цитоплазменного отношения, увеличение количества свободных рибосом и полисом, активация ферментов, аэробного и анаэробного фосфорилирования, мембранного транспорта. Клеточная регенерация осуществляется как за счет дифференцированных клеток, обладающих способностью вступать в митотический цикл, так и за счет активизации камбиальных элементов (миоцитов малого объема). При действии ряда повреждающих факторов отмечается фенотипическая трансформация контрактильных миоцитов в секреторные. Данная трансформация часто наблюдается при повреждении внутренней оболочки сосудов.
Мышечная ткань радужки и цилиарного тела относится к четвертому типу сократимых тканей, развивается из зачатка нервной системы. В ряду позвоночных мышечные элементы радужки обнаруживают разнообразную дивергентную дифференцировку. Так, мионевральная ткань рептилий и птиц представлена исчерченными многоядерными волокнами, имеющими большое сходство с мышечной тканью скелетного типа. У млекопитающих и человека основной структурно-функциональной единицей мышц радужки является гладкий одноядерный миоцит, или миопигментоцит (рис. 9.15).

Рис. 9.15. Ультраструктура миопигментоцита: 1 - ядро; 2 - миофиламенты; электронная микрофотография (увеличение 6000)
Миопигментоцит имеет пигментированное тело, содержащее одно ядро, вынесенное за пределы веретеновидной сократимой части. Цитоплазма клеток содержит большое число митохондрий и пигментные гранулы, которые сходны по размерам и форме с гранулами пигментного эпителия.
Миофиламенты в миопигментоцитах делятся на тонкие (7 нм) и толстые (15 нм), по размерам и расположению напоминают миофиламенты гладких миоцитов. Каждый миопигментоцит окружен базальной мембраной. Возле цитоплазматических отростков миоцитов обнаруживаются безмиелиновые нервные волокна.
Регенерация. В немногочисленных работах показана низкая регенерационная активность ткани после повреждения или ее отсутствие.
Это большая генетически разнообразная группа клеток, которая обнаруживается в составе немышечных органов. Источниками развития миоидных клеток являются мезенхима мезодермы, эктодерма, нейроэктодерма и прехордальная пластинка.
Производные мезенхимы мезодермы. Миоэндокринные клетки - это клетки, которые в цитоплазме содержат сократительные филаменты и эндокринные гранулы. Наиболее полно изучены миоэндокринные клетки юкстагломерулярного комплекса почки, вырабатывающие ренин и почечный эритропоэтический фактор. Описаны ренинсекретирующие миоциты в стенке матки, миоидные секреторные клетки теки фолликула яичника. К производным мезенхимы относятся сократимые клетки в составе кровеносных сосудов - перициты (см. главу 7).
В постнатальном онтогенезе наиболее полно изучены свойства миофибробластов. Клетки обнаруживаются в грануляционной ткани заживающих ран и развиваются из малодифференцированных предшественников (адвентициальных клеток). Клетки характеризуются наличием в цитоплазме большого числа сократимых филаментов, занимающих 1/3-2/3 части объема цитоплазмы, типичных для гладких миоцитов плотных телец и палочковидного ядра. Миофибробласты взаимодействуют путем десмосомоподобных и щелевых контактов. Цитоплазма связывает антитела к миозину гладких мышц. Наряду с гладкими миофиламентами в цитоплазме миофибробластов обнаруживаются гранулярная эндоплазматическая сеть и комплекс Гольджи, которые участвуют в выработке коллагена III типа.
Производные эктодермы. К этой группе относятся миоэпителиоциты слюнных, потовых, молочных желез и миоидные эпителиоциты регенерирующего эпидермиса. В составе желез миоэпителиоциты, как и секреторные клетки, развиваются из стволовых клеток путем их дивергентной дифференцировки. Миоидные эпителиоциты обнаруживаются в первые дни регенерации эпидермиса кожи в его базальной части в области края раны (рис. 9.16).

Рис. 9.16. Ультраструктура миоидного эпителиоцита регенерирующего эпителия кожи: 1 - ядро; 2 - цитоплазма с миофиламентами; 3 - митохондрии с просветленным матриксом; электронная микрофотография (увеличение 80 00)
Они содержат в цитоплазме плотно расположенные и ориентированные вдоль клетки миофиламенты, сохраняют связь с базальной мембраной с помощью полудесмосом.
Производные нейроэктодермы. В эту группу включаются миоидные гистологические элементы, напоминающие по своему строению волокна скелетной мышечной ткани. Последние обнаружены в составе шишковидной железы, мозжечка, головного мозга и др. Это многоядерные клетки, содержащие исчерченные миофиламенты. При культивировании глиальной клеточной линии В9, полученной из опухоли мозга, обнаружены многоядерные мышечные трубочки с поперечно-исчерченными фибриллами. К производным прехордальной пластинки относятся миоидные клетки адено-гипофиза и тимуса. В тимусе клетки расположены преимущественно в мозговом веществе дольки, миофибриллы формируют саркомеры; клетки содержат одно-два ядра. Установлено наличие большого числа миоидных клеток тимуса у больных миастенией. Для миоидных клеток независимо от источника развития характерно наличие в цитоплазме большого числа сократимых филамен-тов - гладких и поперечно-исчерченных. Следует, однако, помнить, что наличие актомиозинового комплекса характерно для всех эукариотических клеток. Это необходимо для выполнения общеклеточных функций (см. главу 4).
Таким образом, миоидные клетки в составе немышечных органов возникают или из стволовых клеток ведущей ткани, или из малодифференцированных предшественников в составе органоспецифической соединительной ткани. В условиях патологии появление миоидных клеток в составе немышечных органов требует дальнейшего исследования клеточных источников их развития.
Контрольные вопросы
1. Классификация и источники развития мышечных тканей.
2. Структурно-функциональные единицы различных видов мышечных тканей.
3. Регенерационные свойства различных видов мышечных тканей.
4. Источники развития миоидных клеток.