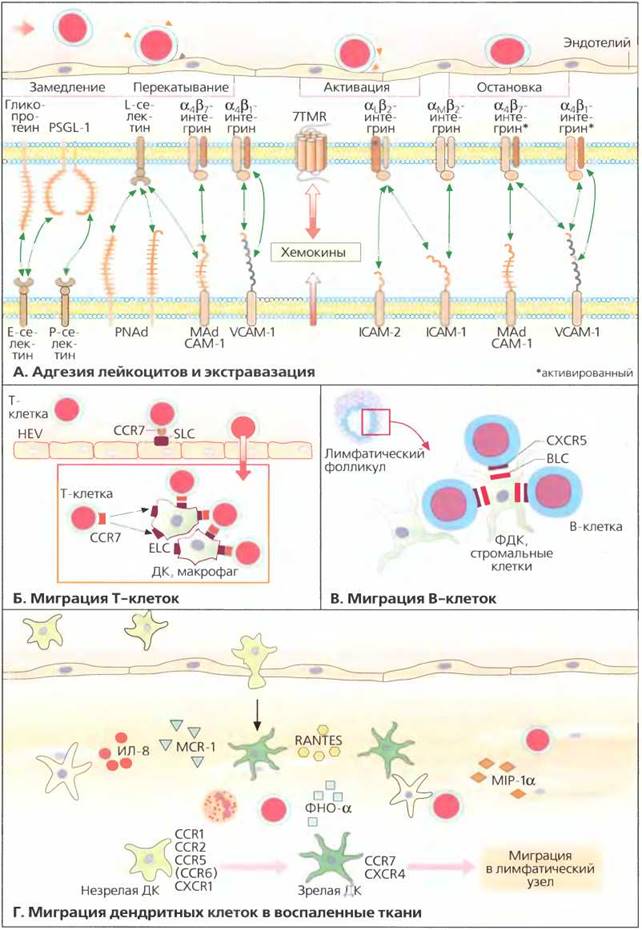
А. Адгезия лейкоцитов и экстравазация
Лимфоциты могут выйти из циркуляции, пройдя сквозь слой эндотелия. Специализированный эндотелий посткапиллярных венул лимфоузлов и пейеровых бляшек состоит из необычайно крупных клеток, называемых высокими эндотелиальными венулами (HEU); он способствует миграции лейкоцитов. В воспаленных тканях миграция активизируется. На первой стадии этого процесса циркуляция лейкоцитов замедляется благодаря действию молекул адгезии. Этот процесс осуществляется при помощи селектинов: лейкоциты экспрессируют L-селектин, а эндотелиальные клетки экспрессируют Е-селектин и Р-селектин (также обнаружены на тромбоцитах). Все типы селектинов связывают сиаломуцин-подобные гликопротеины типа сиалил-Льюисх, например PSGL-1 (P-selectin glycoprotein ligand-1) — наиболее важный лиганд для Р-селектина, но также и для Е- и L-селектинов. Кроме того, L- селектин связывается с аддрессинами типа PNAd (peripheral node addressin), характерными для периферических лимфоузлов, и MAdCAM-1 (mucosal addressin cell adhesion molecule-1), характерными для пейеровых бляшек. Из-за низкой аффинности такие адгезионные связи легко разрываются и вновь образуются все дальше и дальше, способствуя медленному перекатыванию лейкоцитов Торможению и перекатыванию лейкоцитов также способствуют а-интегрины типа СХ4Р1 (другое название VLA-4) и α4(37. Однако образованных селектинами связей недостаточно для остановки лейкоцитов. Эндотелиальные клетки секретируют хемокины, которые связывают специфические хемокиновые рецепторы катящихся лейкоцитов, имеющие семь трансмембранных доменов (7TMR). В результате быстрой активации (32-интегринов, например aLβ2 (LFA-1, CD11 a/CD18) или амβ2 (Mac-1, CD11 b/CD18), a также а4-интегринов, происходит связывание некоторых молекул адгезии, принадлежащих к суперсемейству иммуноглобулинов, например, ICAM-1 (CD54), ICAM-2 (CD102), VCAM-1 (CD106) и MAdCAM-1. Это способствует более прочному связыванию лейкоцитов, которые, наконец, останавливаются и мигрируют в эндотелий.
Б. Миграция Т-клеток
Для обнаружения антигенов Т-лимфоциты периодически мигрируют ко вторичным лимфоидным органам. После активации опосредованной селектинами адгезии Т-лимфоциты начинают перекатываться по эндотелию и на высоких эндотелиальных венулах (HEV) встречаются с хемокином вторичных лимфоидных тканей (secondary lymphoid tissue chemokine, SLC). Хемокин SCL образуется клетками HEV и стромальными клетками в Т-клеточной зоне вторичных лимфоидных органов. Т-клетки экспрессируют хемокиновый рецептор CCR7, являющийся рецептором для SLC и ELC (Epstein-Barr virus-induced receptor ligand chemokine, другое название MIP-3|3 (macrophage inflammatory protein-3β)). Передвижение Т-клеток осуществляется под действием SLC, образуемого стромальными клетками, и ELC, образуемого дендритными клетками и макрофагами в Т-клеточной зоне лимфоузла. Т-клетки памяти экспрессируют меньше CCR7, чем наивные Т-клетки, поэтому они менее способны проходить сквозь лимфатические узлы. При повторной стимуляции антигеном они вновь быстро реагируют с SLC и ELC. Клетки типа Тн2 также характеризуются низким уровнем экспрессии CCR7, в связи с чем они не мигрируют в Т-клеточную зону, а обнаруживаются в основном на границе В-клеточной зоны лимфоузла, где оказывают помощь В-клеткам.
В. Миграция В-клеток
В-клетки могут встретиться с антигенами в кровотоке, лимфатических узлах или селезенке. Они также могут распознать антиген на поверхности антиген- презентирующих клеток или фолликулярных дендритных клеток (ФДК) внутри фолликулов. В-Лимфоциты привлекаются в лимфоузлы хемоаттрактантом В-лимфоцитов (B-lymphocyte chemoattractant, BLC), образуемым ФДК и стромальными клетками. Соответствующим рецептором для BLC на В-лимфоцитах является хемокиновый рецептор CXCR5.
Г. Миграция дендритных клеток в воспаленные ткани
В местах воспаления микробные антигены захватываются эпидермальными клетками Лангерганса (КЛ). Микробные компоненты типа липополисахарида (ЛПС) инициируют созревание КЛ, которые затем перемещаются в дермальные лимфатические сосуды. ЛПС индуцирует секрецию воспалительных цитокинов типа ФНО-а и хемокинов М1Р-1а, МСР-1, ИЛ-8 и RANTES дермальными ДК и макрофагами. Это привлекает незрелые ДК, экспрессирующие соответствующие хемокиновые рецепторы CCR1, CCR2, CCR5, CCR6 и CXCR1. В процессе созревания происходит снижение уровня экспрессии перечисленных рецепторов, и в результате ДК могут покинуть участок воспаления В это же время повышается уровень экспрессии хемокиновых рецепторов CCR7 и CXCR4. Зрелые ДК, экспрессирующие CCR7, привлекаются эндотелиальными клетками дермальных лимфатических сосудов, экспрессирующими лиганд CCR7 (SLC), а затем перемещаются в субкапсулярные синусы региональных лимфатических узлов. Здесь под действием градиентов ELC и SLC они продвигаются в Т-клеточные зоны.
Адгезия и миграция лейкоцитов