
Опорно-двигательную систему человека образуют костный скелет и скелетные мышцы. Благодаря способности к сокращению мышцы приводят в движение кости скелета, в результате чего тело человека или его части могут перемещаться в пространстве и выполнять ту или иную работу. Сокращение мышц происходит под влиянием нервных импульсов, поступающих из центральной нервной системы. Скелетные мышцы являются одним из главных эффекторных аппаратов нервной системы, что убедительно показано физиологами. И.М. Сеченов писал: «Все бесконечное разнообразие внешних проявлений мозговой деятельности сводится окончательно к одному лишь явлению - мышечному движению». Кроме костного скелета и мускулатуры к системе органов движения и опоры относятся суставы, хрящи, сухожилия, связки, фасции.
Главная функция костей - обеспечение твердой опоры человеческого тела. Наряду с этой механической функцией кости принимают также участие в минеральном обмене, поскольку в них содержится основной запас кальция, фосфора и других минеральных веществ. В костях находится красный костный мозг - основной орган кроветворения. Кость - орган, построенный преимущественно из костной ткани. В состав каждой кости входит также еще ряд тканей, находящихся в оптимальном соотношении.
Для примера рассмотрим строение трубчатой кости, а именно бедренной кости человека (рис. 21.1). Она состоит из пластинчатой костной ткани, надкостницы (периоста), эндоста, суставных хрящей, синовиального эндотелия, сосудов и нервов. Полость диафиза, а также пространства губчатого вещества эпифизов заполнены костным мозгом. Компактное вещество кости представлено пластинчатой костной тканью (см. главу 8).

Рис. 21.1. Схема строения кости (по Н.В. Дедух, 2002, с изменениями): 1 - кровеносные сосуды; 2 - промежуточные пластинки; 3 - губчатая костная ткань; 4 - прободающий канал; 5 - центральный канал остеона; 6 - перестраивающаяся поверхность; 7 - периост; 8 - наружные опоясывающие пластинки
Снаружи диафиза кости имеется надкостница (периост), далее идут наружные опоясывающие (генеральные) пластинки. Изнутри со стороны костномозговой полости располагаются внутренние опоясывающие (генеральные) пластинки, покрытые эндостом. Основную же часть трубчатой кости, расположенную между наружными и внутренними опоясывающими пластинками, составляют остеоны (гаверсовы системы) и заполняющие промежутки между ними промежуточные пластинки (остаточные остеоны).
Остеон - это трехмерная цилиндрическая система концентрически расположенных костных пластинок и остеоцитов, окружающих центральный канал остеона (рис. 21.2). В костных пластинках оссеиновые фибриллы направлены параллельно и плотно прилежат друг к другу. Костно-пластинчатые цилиндры как бы вставлены один в другой. В соседних концентрических костных пластинках оссеиновые фибриллы идут под другим углом. Благодаря этому достигается исключительная прочность остеонов. Сложная конструкция остеонов образуется в процессе гистогенеза костной ткани и ее постоянной перестройки в онтогенезе. Часть остеонов разрушается, но возникают новые остеоны. Источником их служат камбиальные клетки, расположенные в рыхлой соединительной ткани вокруг сосудов в каналах остеонов. Большую роль в процессе перестройки и особенно в механизмах восприятия физических нагрузок отводят пьезоэлектрическим эффектам. При сгибании костных пластинок на их поверхности возникают положительный и отрицательный заряды. Полагают, что положительный заряд вызывает изменение функциональной активности остеокластов, а отрицательный заряд - остеобластов.
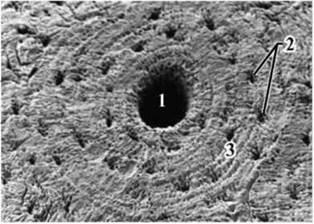
Рис. 21.2. Строение остеона: 1 - центральный канал остеона; 2 - лакуны остеоцитов; 3 - концентрические пластинки остеона; сканирующая электронная микрофотография (увеличение 3000) (по О.В. Слесареву, 2011)
Таким образом, в костной ткани гармонично протекают процессы созидания и разрушения, благодаря этому достигаются механическая прочность и физиологическая регенерация кости.
Рост трубчатых костей в длину заканчивается обычно к 20 годам жизни. До этого времени функционирует метаэпифизарная пластинка роста, расположенная между эпифизом и диафизом. В метаэпифизарной пластинке различают пограничную зону, расположенную ближе к костной ткани эпифиза. Эту зону называют также зоной покоящегося хряща. Далее выделяют зону пролиферирующего молодого хряща, или зону столбчатых клеток. Здесь образуются новые хондробласты для замены тех хрящевых клеток, которые погибают у диафизарной поверхности пластинки. Следующая зона в метаэпи- физарной пластинке называется зоной созревающего хряща, или зоной пузырчатых клеток. Она характеризуется разрушением хондроцитов с последующим энхондральным окостенением. Выделяют еще зону обызвествления хряща. Она непосредственно граничит с костной тканью диафиза. В нее проникают капилляры и остеогенные клетки. Последние дифференцируются в остеобласты, образующие на диафизарной стороне метаэпифизарной пластинки костные перекладины.
Таким образом, интерстициальный рост хряща на эпифизарной стороне метаэпифизарной пластинки отодвигает эпифиз от диафиза, но метаэпифи-зарная пластинка не увеличивается в толщине, так как со стороны диафиза она постоянно подвергается резорбции и замещается костной тканью. За счет этого и происходит рост трубчатых костей в длину.
Регенерация кости после перелома. При переломах костей наблюдаются прямые и непрямые повреждения тканей, так как разрываются связанные с костью соединительные, мышечные ткани, кровеносные сосуды и нервы. В область перелома изливается кровь, которая свертывается, образуя сгусток. На некотором расстоянии от места перелома кости остеоциты в поврежденных остеонах гибнут и часть костной ткани отмирает. Регенерация происходит путем образования новой костной ткани между отломками и вокруг них. В процессе посттравматического остеогенеза формируются наружная (периостальная), межотломковая (интермедиарная) и внутренняя (эндостальная) части костного регенерата (рис. 21.3).

Рис. 21.3. Регенерация кости после перелома: 1 - периостальный регенерат; 2 - эндостальный регенерат; 3 - надкостница; 4 - костный мозг; 5 - отмирающие участки костных отломков (по А. Хэму, Д. Кормаку, 1983, с изменениями)
Источником развития периостальной части регенерата служат остеогенные клетки надкостницы.
Интермедиарная часть образуется за счет остеогенных элементов, сохранившихся в каналах остеонов. Источником эндостального остеогистогенеза являются остеогенные клетки в составе эндоста и костного мозга. Кроме детерминированных остеогенных клеток в формировании костного регенерата принимают участие камбиальные (адвентициальные) клетки, сопровождающие растущие сосуды, которые могут дифференцироваться в остеобласты. В наружных частях регенерата за счет пролиферации эндотелиоцитов идет рост сосудов, но медленный. Это отражается на дифференцировке остеогенных клеток: в отсутствие капилляров (и кислорода) остеогенные клетки превращаются в хондроциты, в результате чего в наружных частях регенерата образуется хрящ. Если капилляры прорастают в регенерат быстро, то в присутствии кислорода из остеогенных клеток сразу возникает ретикулофиброзная костная ткань. По мере перестройки регенерата хрящ замещается костью губчатого типа. Костные перекладины вблизи от костных отломков прочно скрепляются с ними и между собой. В губчатой костной ткани между перекладинами образуются полости (туннели) за счет рассасывания нежизнеспособных участков кости остеокластами. В образующиеся полости (туннели) врастают капилляры и остеобласты. Выстилающие изнутри эти полости остеобласты путем аппозиционного роста образуют слоистую структуру стенок. За счет заполняющейся изнутри концентрическими слоями костной ткани стенки полостей становятся толще, а просвет суживается. Так возникают остеоны (гаверсовы системы). Внутри остеонов имеется один или два кровеносных сосуда, доставляющих питательные вещества для остеоцитов, окруженных пятью-шестью концентрически расположенными костными пластинками. Процесс внутренней перестройки регенерата в области перелома кости с превращением ретикулофиброзной костной ткани в пластинчатую продолжается долго, иногда несколько месяцев. Однако в конце концов в результате этого сложного процесса в месте перелома кости, как правило, происходит полное восстановление конфигурации и архитектоники кости. Тесное соприкосновение и жесткая фиксация отломков кости способствуют более быстрому процессу регенерации.
Регенерация при огнестрельном повреждении кости имеет ряд особенностей. Огнестрельный снаряд при ударе о кость вызывает в последней возникновение трещин и множества осколков, что замедляет процесс регенерации. В экспериментальных и клинических работах показано, что сохранившие жизнеспособность остеогенные клетки костных осколков способны к пролиферации, дифференциации и формированию ретикулофиброзной костной ткани, являясь источником посттравматической регенерации костной ткани (рис. 21.4). Непременным участником регенерации являются макрофаги костномозгового происхождения - остеокласты. Последние участвуют в ремоделировании костной ткани.
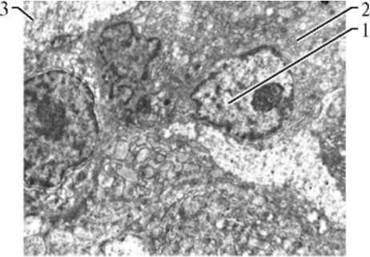
Рис. 21.4. Остеобласты, синтезирующие органическую основу межклеточного вещества регенерирующей костной ткани: 1 - ядро с крупным ядрышком; 2 - цитоплазма с развитой гранулярной эндоплазматической сетью; 3 - межклеточное вещество регенерата; электронная микрофотография (увеличение 12 000) (по В.Г. Гололобову, 2011)
Различают непрерывные (синостозы, синхондрозы и синдесмозы) и прерывные (диартрозы) соединения костей. Синостозы - это неподвижные плотные соединения, осуществляемые за счет костной ткани (кости таза). Синхондрозы - соединения костей при помощи хряща (например, межпозвонковые диски).
Синдесмозы - фиброзные соединения (рис. 21.5). К ним относятся связки, межкостные перепонки и швы. Прерывные соединения (диартрозы) называют синовиальными соединениями, или суставами.
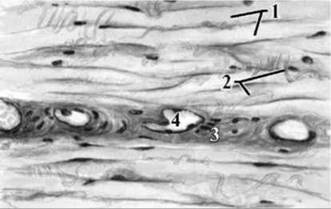
Рис. 21.5. Схема строения связки: 1 - пучки коллагеновых волокон; 2 - эластические волокна; 3 - прослойка рыхлой соединительной ткани; 4 - кровеносные сосуды
В суставе различают суставные поверхности сочленяющихся костей, суставную сумку и суставную полость. Суставные поверхности костей покрыты слоем гиалинового хряща, который не имеет надхрящницы. Суставная капсула состоит из наружного фиброзного слоя и внутренней синовиальной оболочки. Фиброзный слой капсулы представлен плотной соединительной тканью. Соединение надкостницы одной из сочленяющихся костей с надкостницей другой осуществляется переплетающимися пучками коллагеновых и эластических волокон, направленных вдоль продольной оси сустава.
Синовиальная оболочка состоит из поверхностного и глубокого коллагеново-эластических слоев, содержащих сосуды и нервные волокна, и покровного слоя, выстилающего суставную полость. Покровный слой представлен синовиальным эндотелием. Он состоит из синовиоцитов - специализированных клеток фибробластического ряда. Различают макрофагоподобные (фагоцитарные) синовиоциты и синовиальные фибробласты (или секреторные синовиоциты). Макрофагоподобные синовиоциты (антигенпредставляющие клетки) очищают содержимое синовиальной полости от продуктов распада. Секреторные синовиоциты вырабатывают синовию - липкую прозрачную жидкость, содержащую гиалуроновую кислоту. Синовия играет роль смазки, уменьшающей трение сочленяющихся в суставе костей.
Суставная полость представляет собой герметически закрытое щелевидное пространство, заполненное синовиальной жидкостью (синовием). В крупных суставах объем жидкости составляет 2-3 мл. Среди добавочных образований суставов различают складки синевиальной оболочки, внутрисуставные хрящи (диски, мениски) и связки.
Суставы новорожденных, как и мышцы, анатомически сформированы, но части костей, формирующих сустав, состоят из хрящевой ткани. Суставы и связки у детей «мягкие» и легко растяжимы, поэтому устойчивы к повреждению при гораздо большем (по сравнению с взрослыми) объеме движений. В течение первых 7 лет жизни происходит развитие синовиальной оболочки и капсулы суставов, в капсуле увеличивается содержание эластических и коллагеновых волокон. Формирование суставных поверхностей, капсулы и связок суставов завершается в основном в подростковом возрасте. К 12-13 годам полностью дифференцируются нервные элементы суставов. С возрастом происходят инволютивные изменения суставных хрящей, теряется их гладкая поверхность, хрящ истончается, суставная щель суживается, капсула сустава склерозируется, образуются костные выросты (остеофиты) на суставных поверхностях, уменьшается подвижность суставов.
Регенерация суставного хряща зависит от степени повреждения и, как правило, неудовлетворительная, поэтому разрабатываются методы клеточной терапии. Для этого используются собственные хрящевые клетки, которые после размножения в питательной среде переносят на биоматериалы и трансплантируют в дефект суставного хряща.
Хрящи представлены гиалиновой (суставные поверхности костей, хрящи гортани и бронхов), эластической (ушная раковина, надгортанник) или волокнистой (межпозвонковые и суставные диски) тканями. На поверхности хряща располагается соединительная ткань - надхрящница, в составе которой проходят сосуды и нервы, а также находятся малодифференцированные хондрогенные клетки, составляющие камбий (рис. 21.6). За счет деления этих клеток происходит рост хряща путем наложения (аппозиционный). Внутренний (интepcтициaльный) рост ocyщecт-вляется путем деления хондробластов. В центре хряща располагаются изогенные группы хондроцитов, которые утратили способность делиться. В хряще нет сосудов, и питание его происходит диффузно. С возрастом могут возникнуть гибель хондроцитов и отложение солей кальция. Хрящ применяется с целью трансплантации, в нем нет сосудов с кровью, и он не подвергается быстрому отторжению из-за несовместимости тканей.
Регенерация хряща происходит за счет деления камбиальных клеток надхрящницы и синтеза межклеточного вещества хондробластами.

Рис. 21.6. Схема строения эластического хряща: 1 - надхрящница; 2 - сеть эластических волокон; 3 - хондроциты
Каждая скелетная мышца представляет собой активный орган движения, построенный из многих тканей. Ведущей тканью является поперечнополосатая мышечная ткань. Кроме того, в состав мышцы входят рыхлая и плотная соединительные ткани, сосуды и нервы.
Функциональное значение мышцы как органа состоит в ее способности сокращаться и изменять при этом свои размеры. Это свойство мышцы обусловлено сократительной способностью скелетной мышечной ткани, что, в свою очередь, связано с сокращением мышечных волокон в результате укорочения миофибрилл в пределах каждого саркомера. Мышечные волокна являются основными рабочими элементами мышцы (см. главу 9).
Различают красные и белые мышечные волокна (рис. 21.7). Четкие границы между красными и белыми мышечными волокнами отсутствуют, поэтому их подразделение производится на основе сопоставления количественных показателей их структурных компонентов. Так, красные мышечные волокна (нередко обозначаемые как мионы I типа) содержат больше саркоплазмы и, соответственно, меньшее количество миофибрилл. В саркоплазме определяются многочисленные митохондрии, которые отличаются высокой активностью окислительных ферментов (в частности, сукцинатдегидрогеназы - СДГ).

Рис. 21.7. Гетероморфия мышечных волокон по активности сукцинатдегидрогеназы: 1 - волокна малого диаметра, интенсивно окрашенные; 2 - волокна большого диаметра, слабо окрашенные; 3 - волокна с промежуточными свойствами; микрофотография, обработка по Нахласу (увеличение малое)
Саркоплазма характеризуется повышенным содержанием миоглобина. Диаметр красных мышечных волокон меньше, чем средний диаметр белых мышечных волокон. Вокруг красных мионов интенсивно развита капиллярная сеть. По данным гисторадиографии, для этих мышечных волокон характерен более высокий уровень синтеза белков. На красных мышечных волокнах некоторых мышц (например, глаза) определяются нетипичные множественные моторные бляшки.
Белые мышечные волокна (или мионы II типа) содержат большее число мио-фибрилл, расположенных в виде столбиков, или колонок, образующих на поперечном срезе широкие поля. Саркоплазма образует тонкие прослойки между миофибриллярными колонками. В ней мало митохондрий. Невысоко содержание и миоглобина. Диаметр белых мышечных волокон больше, чем красных. На каждом белом мышечном волокне имеется лишь одна моторная бляшка типичного строения. Белые мионы сокращаются быстрее, чем красные.
Между красными и белыми мышечными волокнами имеются переходные формы - промежуточные волокна. Мышцы человека, как правило, смешанные по составу мионов разных типов, но каждая из них имеет свой рисунок, определяемый процентным соотношением числа красных, белых и промежуточных мышечных волокон.
Важную роль в построении мышцы как органа играет соединительная ткань, которая объединяет мышечные волокна в пучки, проводит кровеносные сосуды и нервы, а также обеспечивает прикрепление мышцы к костям. Рыхлая соединительная ткань внутри мышечных пучков называется эндомизием. Пучки мышечных волокон соединяются между собой также прослойками рыхлой соединительной ткани, которую называют перимизием. Снаружи мышца покрыта плотной соединительнотканной оболочкой - эпимизием, или фасцией. Внутримышечная соединительная ткань обеспечивает развитие густой капиллярной сети вокруг каждого мышечного волокна (рис. 21.8). Благодаря эластическим свойствам она участвует в процессах, обусловливающих расслабление мышцы после ее сокращения.

Рис. 21.8. Схема строения участка мышцы как органа: прослойки рыхлой соединительной ткани между пучками мышечных волокон (перимизий); в перимизии: 1 - артерия; 2 - вена; 3 - лимфатический сосуд; 4 - эндомизий
Иннервация мышц. Афферентные нервные волокна в скелетных мышцах имеют разветвленные окончания в эндомизии. Они подходят также к сложно-устроенным мышечным рецепторам типа мышечных и сухожильных веретен.
Мышечные веретена представляют собой инкапсулированные рецепторные образования веретеновидной формы длиной 3-5 мм и толщиной около 0,2 мм (рис. 21.9). В пределах скелетных мышц они располагаются продольно и при удлинении всей мышцы растягиваются. Количество их в составе отдельных мышц измеряется десятками или сотнями. Больше мышечных веретен содержится в мышцах кисти, требующих тонких движений. Каждое веретено содержит группу (около 10) мышечных волокон, называемых интрафузальными, в отличие от экстрафузальных волокон, находящихся вне веретен. Под соединительнотканной капсулой веретена находится жидкость, омывающая интрафузальные мышечные волокна. Последние подразделяются на два типа: волокна с ядерной сумкой (ЯС-волокна) и волокна с ядерной цепочкой (ЯЦ-волокна). Эти обозначения отражают характер расположения в них ядер. ЯЦ-волокна тоньше и короче и представлены в большем количестве. Если ЯС-волокон обычно от 1 до 4, то ЯЦ-волокон может быть до 10 в одном мышечном веретене.
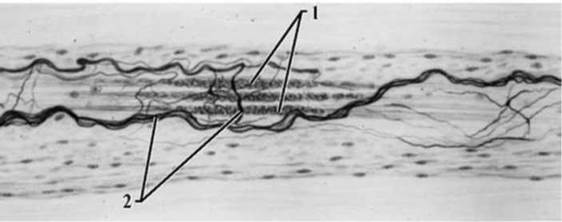
Рис. 21.9. Схема строения нервно-мышечного веретена: 1 - интрафузальные мышечные волокна; 2 - нервные волокна (по А.А. Клишову, 1984)
Мышечные веретена иннервируются афферентными и эфферентными нервными волокнами. К ЯС- волокнам подходят миелиновые афферентные нервные волокна, образующие окончания аннулоспирального типа (первичные окончания). ЯЦ-волокна имеют афферентную иннервацию как от того же первичного окончания, так и от более тонких афферентных волокон (вторичные окончания). Первичное окончание реагирует на степень и скорость растяжения мышц, а вторичное - только на степень растяжения. Импульсы по афферентным нервным волокнам поступают в спинной мозг, где афферентные нейроны передают их на гамма-мотонейроны.
Наряду с афферентной иннервацией интрафузальные мышечные волокна имеют и эфферентную иннервацию, с помощью которой они находятся в определенной степени натяжения. Эфферентные нервные окончания образуют нервные волокна гамма-мотонейронов. Такая сложная система иннервации мышечных веретен необходима для автоматического контроля ими степени и скорости растяжения скелетных мышц. Мышечные веретена сигнализируют в центральную нервную систему о любых рассогласованиях между степенью растяжения интрафузальных и экстрафузальных мышечных волокон, на что следует ответная реакция, корригирующая сокращение мышцы в целом. Мышечные веретена обеспечивают «мышечное чувство» вместе с другими афферентными окончаниями из группы проприоцепторов, которые участвуют в регуляции движений и позы, а именно: сухожильные и суставные рецепторы.
Сухожильные рецепторы инкапсулированного типа находятся в местах соединения мышц с их сухожилиями, а также в апоневрозах. Они имеют лишь афферентную иннервацию. Суставные рецепторы по строению очень похожи на сухожильные веретена. В суставных капсулах много свободных нервных окончаний, пластинчатых телец и других механорецепторов.
Скелетные мышцы как эффекторные аппараты нервной системы содержат большое количество эфферентных нервных волокон. На каждом мышечном волокне имеются двигательные нервные окончания - концевые моторные бляшки. Посредством этих образований нервные импульсы передаются с моторного нейрона на мышечное волокно. Моторная бляшка (нервно-мышечное соединение, или аксомышечный синапс) состоит из нервного полюса (концевого ветвления аксона) и мышечного полюса - части мышечного волокна, к которой прилежит терминаль аксона. Последняя содержит митохондрии, синаптические пузырьки с ацетилхолином и пресинаптическую мембрану, а снаружи - нейролеммоциты (шванновские клетки). Синаптическая щель в аксомышечном синапсе имеет вид углублений с первичными и вторичными складками (см. главу 10). Постсинаптическая мембрана представляет собой часть плазмолеммы мышечного волокна, через которую потенциал действия распространяется по мембранам трубочек Т-системы. Это изменяет содержание кальция в саркоплазматической сети и приводит к сокращению миофибрилл.
Моторные бляшки бывают типичные и гроздевидные. На красных мионах определяются гроздевидные моторные бляшки. Для белых мышечных волокон характерны типичные моторные бляшки. Обычно двигательное нервное волокно разветвляется на несколько десятков веточек, каждая из которых заканчивается моторной бляшкой. Совокупность мышечных волокон, иннервируемых одним моторным нейроном, составляет вместе с этим нейроном нейромоторную единицу.
Рост скелетных мышц. В период постнатального роста организма вместе с удлинением костей происходит рост в длину и толщину скелетных мышц. Масса скелетных мышц увеличивается также при интенсивных физических упражнениях. При этом рост мышц обусловлен утолщением (гипертрофией) мышечных волокон. Количество же их существенно не меняется. В основе гипертрофии мышечных волокон лежит увеличение числа миофибрилл и других органелл. Новые миофибриллы образуются из миофиламентов, которые строятся в свою очередь из синтезируемых сократительных белков. Рост мышечных волокон в длину осуществляется в результате слияния с ними миосателли-тоцитов (см. главу 9). Удлинение миофибрилл достигается пристройкой к их концам новых саркомеров. Это происходит в местах прикрепления мышечных волокон к сухожилиям. При старении в скелетных мышцах регистрируются как компенсаторно гипертрофированные мышечные волокна, так и атрофированные группы волокон.
Регенерация скелетных мышц. После повреждения скелетных мышц часть мышечных волокон в области травмы подвергается разрушению. Продукты их распада резорбируются путем фагоцитоза и аутолиза (рис. 21.10). На месте травмы разрастается грануляционная ткань, в которую врастают мышечные элементы регенерата. Источником восстановления мышц являются в основном миосателлитоциты, способные делиться митозом и превращаться в миобласты (см. главу 9). Последние сливаются друг с другом, формируя миосимпласты. В ходе последующей их дифференцировки образуются новые мышечные трубочки и зрелые мышечные волокна. Процесс восстановления поврежденной мышцы продолжается около одного месяца. Для регенерации скелетной мышцы имеет важное значение восстановление иннервации (нервно-трофическое влияние), кровоснабжения и функционального натяжения. После тяжелых травм значительные дефекты скелетных мышц полностью не восстанавливаются. Обычно в таких случаях место травмированной мышечной ткани заполняется фиброзной рубцовой тканью. Этот процесс, как правило, сопровождает заживление мышечной раны после огнестрельного повреждения.
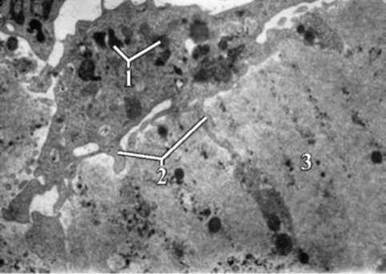
Рис. 21.10. Макрофаг, участвующий в резорбции поврежденного мышечного волокна: 1 - лизосомы; 2 - отростки макрофага; 3 - поврежденное мышечное волокно; электронная микрофотография (увеличение 6000)
С помощью сухожилий обеспечивается связь скелетных мышц с костями. Сухожилия образованы плотной оформленной соединительной тканью (рис. 21.11). В сухожилиях коллагеновые пучки постоянно находятся в состоянии натяжения. В процессе гистогенеза сухожилий при дифференцировке сухожильных клеток образуются коллагеновые волокна, располагающиеся параллельно друг другу - оформленный тип строения (см. главу 8). Каждый пучок коллагеновых волокон отделяется от соседнего слоем сухожильных клеток (тендоцитов). В целом этот комплекс клеток и волокон называется сухожильным пучком 1-го порядка. Группа пучков 1-го порядка, окруженная прослойками рыхлой соединительной ткани, составляет сухожильный пучок 2-го порядка. Отделяющие эти пучки прослойки рыхлой соединительной ткани называют эндотенонием.

Рис. 21.11. Схема строения сухожилия (поперечный срез): 1 - пучки 1-го порядка; 2 - сухожильные клетки; 3 - эндотеноний между пучками 2-го порядка; 4 - перитеноний
Группа сухожильных пучков 2-го порядка образует сухожильный пучок 3-го порядка. Он окружен плотной соединительнотканной оболочкой - перитенонием. Несмотря на сильное развитие коллагеновых структур, оттесняющих на второй план клетки, сухожилия способны к регенерации. Камбиальным источником для восстановительных процессов служат малодифференцированные фибробласты и адвентициальные клетки в составе эндотенония.
Общие закономерности регенерации органов. Боевые повреждения, как правило, сопровождаются нарушением целостности покрова организма, органов внутренней среды и опорно-двигательной системы. При этом формируются дефект органа, очаг некроза, явления дезинтеграции клеток, тканевых и органных структур. На это организм отвечает перестройкой систем защиты и восстановления, происходит зaживление раны, в котором различают несколько фаз.
Первая фаза раневого процесса - фаза воспаления - характеризуется травматическим отеком тканей, повышением сосудистой проницаемости, ацидозом, миграцией лейкоцитов, тучных клеток и макрофагов. Происходит очищение раны путем фагоцитоза и лизиса некротизированных тканей.
Во второй фазе раневого процесса - фазе регенерации - происходит развитие грануляционной ткани, постепенно заполняющей раневой дефект. Основными структурами этой ткани являются фибробласты, межклеточное вещество и капилляры. Клетки фибробластического дифферона грануляционной ткани отличаются от фибробластов дефинитивной соединительной ткани высокой функциональной активностью. Они синтезируют белки и гликозаминогликаны, образуя коллагеновые волокна. В развитии и созревании грануляционной ткани важную роль играют также макрофаги, тучные и плазматические клетки. Грануляционная ткань впоследствии преобразуется в рубцовую соединительную ткань.
Третья фаза раневого процесса - фаза реорганизации рубца - характеризуется прогрессирующим уменьшением числа кровеносных сосудов и клеточных элементов (фибробластов, макрофагов, тучных клеток) при явлениях нарастания общей массы коллагеновых волокон. Параллельно с созреванием грануляционной ткани и ее превращением в рубцовую ткань происходит эпителизация раны. Эпителизация раны и созревание грануляционной ткани строго синхронизированы.
В зависимости от характера и величины ранения, особенностей реактивности организма и других условий раневой процесс протекает по-разному. При небольшом объеме поражения имеет место заживление раны первичным натяжением. Воспаление и замещение дефекта в тканях следуют непосредственно за их травматическим отеком и не сопровождаются нагноением. К концу первой недели раневой процесс в основном завершается. Если же объем поражения велик и края раны оказываются на более или менее значительном расстоянии друг от друга, то заживление раны осуществляется через нагноение с образованием хорошо развитой грануляционной ткани с последующим ее рубцеванием. Заживление раны происходит вторичным натяжением со значительной продолжительностью фаз раневого процесса.
Заживление раны первичным и вторичным натяжением имеет количественные, но не качественные различия. Механизмы регенерации при этом принципиально сходны и включают воспаление, развитие соединительной ткани, эпителизацию. Знание ключевых звеньев регенерационного процесса позволяет целенаправленно вести поиск средств регуляции заживления ран и разработку способов тканевой терапии.
Контрольные вопросы
1. Структурно-функциональные единицы кости и мышцы как органа.
2. Общие закономерности регенерации органов опоры и движения.