
Деятельность органов иммунной системы согласована с деятельностью органов эндокринной системы и нервной системы с ее периферическим сенсорным аппаратом. Все три перечисленные выше системы обеспечивают функцию реактивности организма - восприятие всех внешних и внутренних сигналов, их анализ и адекватную конкретной обстановке регуляцию жизнедеятельности. Так, нейропептиды, синтезируемые эндокринными нейронами, влияют на активность иммунокомпетентных клеток, а биологически активные вещества иммунокомпетентных клеток оказывают влияние на клетки и ткани, сходные с эффектами гормонов эндокриноцитов и пептидов нейронов.
К органам кроветворения и иммунной защиты относятся тимус (вилочковая железа), лимфатические узлы, селезенка, лимфоидные образования в стенке пищеварительного тракта и в других органах и красный костный мозг, где развиваются все клетки крови, в том числе осуществляющие иммунный надзор.
Несмотря на топографическую разобщенность, эти органы вместе с кровью и лимфой образуют единую в функциональном отношении систему, обеспечивающую поддержание процессов кроветворения и иммунной защиты. Органы кроветворения представляют собой открытую систему с постоянным перемещением клеток крови.
Различают центральные и периферические органы кроветворения и иммуногенеза. К центральным органам относят красный костный мозг и тимус. К периферическим кроветворным и иммунным органам принадлежат лимфатические узлы, селезенка, миндалины и лимфоидные образования в составе слизистых оболочек органов пищеварительного тракта.
Во взрослом организме различают красный костный мозг и желтый костный мозг. Красный костный мозг находится в костных ячейках эпифизов трубчатых костей, в губчатом веществе плоских костей, в лопатках, грудине, позвонках, костях черепа. Несмотря на такое рассредоточение, функционально он тесно взаимосвязан благодаря постоянной миграции клеток.
В эмбриогенезе человека костный мозг впервые появляется на 2-3-м месяцах в плоских костях и позвонках, на 4-м месяце - в трубчатых костях конечностей. После врастания кровеносных сосудов в развивающуюся костную ткань между костными трабекулами формируется стромальное микроокружение, необходимое для кроветворения (см. главы 7 и 8). Гемопоэз отчетливо выявляется у 1214-недельных плодов человека.
Строение. Красный костный мозг - центральный гемопоэтический орган (рис. 17.1). В нем находится основная часть кроветворных стволовых клеток и происходит развитие клеток миелоидного и лимфоидного рядов, осуществляется антигеннезависимая дифференцировка В-лимфоцитов. Масса костного мозга составляет 1,6-3,7 кг, то есть 3-6% массы тела. Красный костный мозг имеет темно-красный цвет. Консистенция его полужидкая. Это позволяет делать из него тонкие мазки, изучение которых имеет большое диагностическое значение в клинической практике.

Рис. 17.1. Строение красного костного мозга: а - схема; б - микрофотография, окраска гематоксилином и эозином (увеличение среднее): 1 - эритробласт; 2 - миелоцит; 3 - мегакариоцит; 4 - просвет синусоидного капилляра с эритроцитами
Строма красного костного мозга образована ретикулярной тканью, расположенной между костными перекладинами, идущими от эндоста. Гетероморфные ретикулярные клетки фибробластического вида (фибробласты костного мозга) образуют трехмерную сеть (см. главу 7). Они вырабатывают межклеточное вещество, включающее ретикулярные волокна и амфорный компонент с большим содержанием гликозаминогликанов, ростовые факторы (интерлейкины). Кроме ретикулярных клеток к стромальным клеточным элементам относятся остеобласты, входящие в состав эндоста и способные влиять на пролиферацию гемопоэтических клеток, адвентициальные - малодифференцированные клетки, сопровождающие кровеносные сосуды, жировые клетки. Все эти клетки формируют микроокружение для развивающихся клеток крови и развиваются в результате дивергентной дифференцировки стромальной стволовой клетки.
Строма красного костного мозга пронизана кровеносными сосудами микроциркуляторного русла. В основном это капилляры синусоидного типа диаметром около 30 мкм.
В петлях ретикулярной ткани красного костного мозга расположено множество кроветворных клеток (в том числе кроветворных стволовых, клеток-предшественников миело- и лимфопоэза, клеток гранулоцитарного, эри-троцитарного, лимфоцитарного, моноцитарного и тромбоцитарного рядов на различных стадиях дифференцировки). Количество кроветворных стволовых клеток в красном костном мозге наибольшее по сравнению с таковыми в других кроветворных органах (50 на 105 клеток). Концентрация кроветворных стволовых клеток вблизи эндоста в три раза больше, чем в других участках костного мозга. Именно здесь наиболее интенсивно идет кроветворение, что связано с выработкой остеобластами интерлейкинов и повышенным содержанием кальция.
Развивающиеся клетки крови располагаются в красном костном мозге группами (островками, «гнездами»), представляющими собой диффероны, или гистогенетические ряды клеточной дифференцировки. Эритробласты находятся вблизи макрофагов, содержащих железо фагоцитированных эритроцитов, и получают от них железо, необходимое для построения гемоглобина. Созревающие гранулоциты образуют островки, подобно эритроидным клеткам, с тем, однако, отличием, что они не имеют связи с макрофагами.
Клетки тромбоцитарного ряда (мегакариобласты и мегакариоциты) локализуются преимущественно вблизи синусоидных капилляров. Отростки цитоплазмы мегакариоцитов при этом проникают через поры в стенке синусоидов внутрь капилляра, и от них отделяются фрагменты цитоплазмы в виде кровяных пластинок (тромбоцитов). Последние тут же поступают в кровоток.
В красном костном мозге обычно вокруг кровеносных сосудов встречаются небольшие группы лимфоцитов и моноцитов. Среди множества кровяных клеток в красном костном мозге больше всего зрелых клеточных форм или близких к состоянию зрелости (эритробластов, метамиелоцитов и др.). В случае необходимости, например при кровопотере, они могут быстро завершить дифференцировку и перейти в кровоток. В нормальных условиях через стенку синусоидных капилляров могут проникать лишь зрелые формы клеточных дифферонов.
Желтый костный мозг расположен в диафизах трубчатых костей. Он представлен преимущественно жировой тканью. В жировых клетках содержится пигмент липохром, имеющий желтый цвет. Желтый костный мозг рассматривается как кроветворный резерв, и в случае больших кровопотерь он заменяется красным костным мозгом и начинает функционировать как кроветворный орган. Желтый и красный костный мозг - это два функциональных состояния одного кроветворного органа.
Реактивность, регенерация и возрастные изменения. Красный костный мозг очень чувствителен к действию радиации, интоксикаций бензолом, толуолом и другими ядами. Особенно уязвимы при этом «бластные» клеточные формы. Происходит опустошение костного мозга и в результате остается лишь ретикулярная строма. Костный мозг обладает высокой физиологической и репаративной регенерационной способностью. После удаления части костного мозга или после облучения ионизирующей радиацией происходит его восстановление за счет заселения костного мозга циркулирующими в крови кроветворными стволовыми клетками. Необходимым условием при этом является сохранение жизнеспособности клеток микроокружения. В клинической практике широко применяют различные методы пересадки костного мозга, а также выделения кроветворных стволовых клеток из пуповинной крови и плаценты для лечения заболеваний крови.
Красный костный мозг новорожденного содержит значительное количество лимфоидной ткани; с возрастом (вплоть до периода половой зрелости) численность лимфоидных клеток убывает. С 6 мес постнатальной жизни в диафизах трубчатых костей начинается замещение клеток красного костного мозга жировыми клетками и к периоду полового созревания красный костный мозг остается в основном в плоских костях скелета. В старческом возрасте отмечаются изменения костного мозга, связанные с превращением миелоидной ткани в слизистую соединительную ткань (см. главу 7).
Тимус - центральный орган лимфоидного кроветворения и иммунной защиты организма. В тимусе происходит антигеннезависимая дифференцировка костномозговых предшественников Т-лимфоцитов в иммунокомпетентные клетки - Т-лимфоциты. Последние осуществляют реакции клеточного иммунитета и участвуют в регуляции гуморального иммунитета, что происходит, однако, не в тимусе, а в периферических органах кроветворения и иммунной защиты. Кроме того, в экстрактах тимуса обнаружено более 20 биологически активных веществ, в том числе дистантного действия, что позволяет отнести тимус к железам эндокринной системы. Удаление тимуса у новорожденных животных приводит к их гибели.
Развитие. Тимус закладывается на 2-м месяце эмбриогенеза в виде небольших выпячиваний стенок 3-й и 4-й пар жаберных карманов. На 6-й неделе зачаток железы имеет отчетливо выраженный эпителиальный характер. На 7-й неделе он утрачивает связь со стенкой головной кишки. Эпителий закладки железы, образуя выросты в мезенхиму, приобретает сетевидное строение. Вначале плотная эпителиальная закладка железы разрыхляется благодаря заселению ее лимфоцитами. Число их быстро нарастает, и железа приобретает структуру лимфоэпителиального органа. Мезенхима с кровеносными сосудами формирует капсулу и подразделяет тимус на дольки. В каждой дольке различают корковое и мозговое вещество.
Строение. Снаружи вилочковая железа покрыта соединительнотканной капсулой. Отходящие от нее корковые перегородки подразделяют тимус на дольки (рис. 17.2).
Основу дольки составляют отростчатые эпителиальные клетки - ретикулярные эпителиоциты (периваскулярные, подкапсульные, секреторные и др.), в сетевидном остове которых находятся лимфоциты (тимоциты). Источником развития Т-лимфоцитов являются костномозговые кроветворные стволовые клетки. Далее предшественники Т-лимфоцитов поступают с кровью в подкапсульную зону коркового вещества тимуса и дифференцируются здесь в лимфобласты. В корковом веществе тимуса одни из них под действием выделяемых ретикулярными эпителиоцитами пептидных гормонов - тимозина, тимопоэтина и других, а также макрофагов размножаются и превращаются в антигенреактивные Т- лимфоциты - приобретают антигенраспознающие рецепторы (Т -клеточные рецепторы) строго определенных антигенов. В основе этого феномена лежит перестройка (реаранжировка) генов, кодирующих синтез молекул Т-клеточного рецептора. Это обеспечивает огромное разнообразие рецепторов антигенов (см. ниже). Постмитотические Т-лимфоциты перемещаются в глубокие части коры, становятся средними и малыми лимфоцитами. Последние своими Т-клеточными рецепторами взаимодействуют с рецепторами главного комплекса гистосовместимости (ГКГ I и/или II классов) на плазмолемме ретикулярных эпителиоцитов. Т-лимфоциты, способные узнавать ГКГ, выходят из тимуса, не попадая в мозговое вещество, и заселяют тимусзависимые зоны лимфатических узлов и селезенки. Здесь в периферических органах иммуногенеза происходит их дальнейшее созревание в анти- генреактивные Т-киллеры (цитотоксические), Т-хелперы и другие, после чего они способны к рециркуляции, клонированию (пролиферации), образованию клеток памяти. Т-лимфоциты, не способные распознавать свои молекулы ГКГ и агрессивные к своим белкам, подвергаются разрушению путем апоптоза (примерно 95-97% клеток) и фагоцитируются макрофагами. Следовательно, в корковом веществе Т-лимфоциты приобретают способность в дальнейшем распознавать любые антигены, существующие в природе.
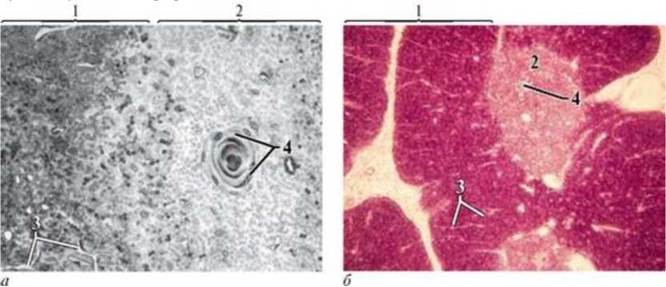
Рис. 17.2. Строение тимуса: а - схема; б - микрофотография, окраска гематоксилином и эозином (увеличение малое): 1 - корковое вещество; 2 - мозговое вещество; 3 - гемокапилляры; 4 - тельце тимуса (Гассаля)
Процесс антигеннезависимой специализации Т-лимфоцитов в корковом веществе долек тимуса происходит в условиях, предохраняющих от избыточного действия на них антигенов. Это достигается за счет образования гематотимического гистиона (барьера), состоящего из эндотелия гемокапилляров с отчетливо выраженной непрерывной базальной мембраной, перикапиллярного пространства с межклеточным веществом и макрофагами, а также из специализированных ретикулярных эпителиоцитов с их базальной мембраной.
Корковое вещество тимуса имеет самостоятельное микроциркуляторное русло. Напротив, в мозговом веществе тимуса капиллярная сеть не выполняет барьерной роли, и через эндотелий этих капилляров зрелые лимфоциты могут покидать и возвращаться в тимус, то есть рециркулировать. Зрелые лимфоциты покидают тимус через стенку посткапиллярной венулы.
Мозговое вещество тимуса имеет более светлую окраску, так как лимфоцитов здесь меньше, чем в корковом веществе. Эпителиальный остов выступает более отчетливо, а ретикулярные эпителиоциты здесь более крупные и многочисленные. В средней части мозгового вещества встречаются эпителиальные слоистые тимусные тельца (Гасселя). В их составе определяются эпителиальные клетки различной функциональной специализации, концентрически наслаивающиеся друг на друга (см. рис. 17.2).
С возрастом количество и размеры их увеличиваются. В строме тимуса кроме ретикулярных эпителиоцитов находятся макрофаги, дендритные клетки костномозгового происхождения, нейроэндокринные клетки - производные нервного гребня, а также миоидные клетки.
В тимусе выявлены адренергические и холинергические нервные волокна, входящие в орган вместе с сосудами.
Реактивность и возрастные изменения. Ткани тимуса являются высокореактивными структурами. При действии повреждающих факторов (интоксикации, травмы и др.) наблюдаются выброс Т-лимфоцитов в кровь и массовая их гибель преимущественно в корковом веществе. Возникающая при таких стресс- воздействиях инволюция тимуса называется временной, быстропроходящей, или акцидентальной. Наблюдаемые при этом явления лимфоцитолиза и фагоцитоза макрофагами гибнущих лимфоцитов рассматриваются как возможные способы высвобождения факторов роста и ДНК, необходимых для восстановительных процессов в тканях. С гибелью лимфоцитов в этих условиях связывают также селекцию Т-лимфобластов. Реактивные изменения тимуса находятся в тесной связи с функциональными изменениями коры надпочечников и содержанием глюкокортикоидов в крови.
Тимус новорожденного имеет дольчатое строение и активно участвует в приспособительных реакциях организма к условиям внешней среды. В течение первых месяцев жизни его относительные размеры достигают максимальных значений. Наибольшую массу и дольчатую гистологическую структуру тимус сохраняет в первые годы жизни. После 20 лет происходит возрастная инволюция тимуса. Это сопровождается уменьшением количества лимфоцитов и развитием жировой ткани. В тех случаях, когда тимус не подвергается обратному развитию, возникает пониженная сопротивляемость организма к инфекциям и интоксикациям.
Лимфатические узлы - это органы, расположенные по ходу лимфатических сосудов. Размер их 0,5-1 см, форма - чаще округлая, овальная или бобовидная. Располагаются они обычно регионарно, группами. С выпуклой стороны узла в него входят приносящие лимфатические сосуды, а с противоположной, называемой воротами, выходят выносящие лимфатические сосуды. Кроме того, в ворота входят артерии и нервы и выходят вены. Общее число лимфатических узлов достигает 1 тыс., что составляет около 1% массы тела. Лимфатические узлы выполняют роль активного биологического фильтра, в котором задерживается и фагоцитируется до 99% всех инородных частиц и бактерий.
Различают неспецифическую защитную функцию лимфатических узлов за счет поглощения микробов из лимфы и специфическую, выражающуюся в иммунном ответе на антигены. Эти органы выполняют и кроветворную функцию. Хотя стволовые клетки в них практически отсутствуют, но пролиферация лимфобластов, дифференцировка В-лимфоцитов в плазмоциты происходит. Лимфа, протекая через лимфатические узлы, обогащается лимфоцитами.
Развитие. Зачатки лимфатических узлов появляются в конце 2-го - начале 3-го месяца эмбриогенеза в виде скоплений мезенхимы по ходу лимфатических сосудов. Вскоре из мезенхимы образуется ретикулярная ткань, составляющая строму органа. К концу 4-го месяца в закладки узлов вселяются лимфоциты и формируются скопления - лимфоидные узелки без центра размножения. Одновременно появляется подразделение органа на корковое и мозговое вещество.
Строение. В лимфатическом узле имеются следующие структурные компоненты: капсула, содержащая много коллагеновых волокон (в области ворот в капсуле есть и гладкие миоциты); трабекулы - перекладины из соединительной ткани, которые, анастомозируя друг с другом, образуют каркас узла; ретикулярная ткань, заполняющая все пространство, ограниченное капсулой и тpaбeкyлaми. В лимфатическом узле различают периферическое корковое вещество и центральное мозговое вещество. Между этими частями выделяют еще паракортикальную (тимусзависимую) зону (рис. 17.3). В корковом веществе расположены скопления лимфоидной ткани в виде лимфоидных узелков (рис. 17.4).

Рис. 17.3. Схема строения лимфатического узла: 1 - капсула; 2 - корковое вещество; 3 - паракортикальная зона; 4 - мозговое вещество; 5 - лимфоидный узелок; 6 - мозговой тяж; 7 - лимфатический синус; 8 - ретикулярная ткань
Это округлые образования диаметром до 1 мм. Различают лимфоидные узелки первичные без центра размножения и вторичные, когда после попадания в организм новорожденного антигенов возникает центр размножения лимфоцитов и корона лимфатического узелка. В центральной части узелка (в центре размножения, или герминативном центре) происходит антигензависимая пролиферация В-лимфоцитов и дифференцировка их в предшественники плазматических клеток. Кроме того,
в центре размножения находятся дендритные клетки костномозгового происхождения, которые на своих отростках удерживают антигены, активирующие В-лимфоциты; макрофаги моноцитарного генеза, фагоцитирующие погибающие апоптозом аутоиммунные В-лимфоциты, антигены и инородные частицы. По периферии вторичного узелка расположена корона полулунной формы, состоящая из малых лимфоцитов (рециркулирующих В-лимфоцитов, В-клеток памяти, незрелых плазматических клеток). На границе центра размножения и короны обнаруживаются Т-лимфоциты (хелперы), которые способствуют развитию В-лимфоцитов в иммунобласты. Последние мигрируют в мозговые тяжи, отходящие от паракортикальной зоны и узелков внутрь мозгового вещества.

Рис. 17.4. Строение лимфатического узла: а - корковое вещество; б - мозговое вещество: 1 - капсула; 2 - лимфоидные узелки; 3 - центр размножения; 4 - мозговые тяжи; 5 - ретикулярные клетки стромы; микрофотографии, окраска гематоксилином и эозином (увеличение среднее)
Лимфоидные узелки являются динамическими структурами. Они то образуются, то исчезают. В процессе изменения структуры лимфоидных узелков различают несколько стадий (формирование светлого центра размножения, появление вокруг центра короны из малых лимфоцитов и др.). Период их существования - 2-3 сут.
Паракортикальная зона лимфатического узла находится на границе между корковым и мозговым веществом. Она называется тимусзависимой зоной, или Т-зоной, так как при удалении тимуса происходит ее исчезновение. В паракортикальной зоне осуществляются бласттрансформация Т- лимфоцитов, их пролиферация и превращение в специализированные клетки системы иммунитета. Здесь много антигенпредставляющих дендритных клеток - интердигитирующих клеток. Они появляются в результате миграции из тканей системы покрова организма внутриэпидермальных макрофагов. Клетки имеют длинные пальцевидные отростки, которые проникают между соседними клетками на большие расстояния. На своей поверхности они несут антигены и представляют их Т-лимфоцитам (хелперам). Кроме того, в этой зоне находятся особые венулы, выстланные эндотелиоцитами кубической формы. Через стенку этих венул происходит переход Т- и В-лимфоцитов из крови в строму лимфатического узла.
Мозговое вещество лимфатических узлов является местом созревания плазматических клеток (см. рис. 17.4). Вместе со вторичными узелками коркового вещества мозговые тяжи составляют тимуснезависимую зону, или В-зону, лимфатических узлов. Мозговые тяжи кроме В-лимфоцитов и плазмоцитов содержат Т-лимфоциты и макрофаги.
Лимфа протекает через лимфатические узлы по синусам - пространствам, содержащим ретикулярную ткань и ограниченным капсулой и трабекулами с одной стороны и узелками и мозговыми тяжами - с другой. Различают краевые, межузелковый и конечный синусы. Лимфа из последнего по лимфатическому сосуду выходит в области ворот. Стенка синуса образована эндотелиоцитами палочковидной формы, между которыми имеются щели, базальная мембрана прерывиста, перициты отсутствуют. Снаружи к эндотелиоцитам примыкают ретикулярные клетки и макрофаги. Последние своими отростками внедряются в просвет синуса и фагоцитируют инородные частицы. В просвете синусов обнаруживаются ретикулярные клетки, макрофаги, лимфоциты, плазматические клетки. Реактивность, регенерация и возрастные изменения. Лимфатические узлы - весьма реактивные структуры. Они чувствительны к действию различных повреждающих факторов (радиации, инфекции, интоксикации и др.). Регенерация их возможна, если сохранены приносящие и выносящие лимфатические сосуды и, хотя бы частично, ретикулярная ткань, пролиферация клеток которой сопровождается заселением кроветворными стволовыми клетками и последующей их дифференцировкой.
Лимфатические узлы у новорожденного относительно крупные, не имеют сформированных лимфоидных узелков и синусов. В течение первых двух лет жизни лимфоидные узелки четко обозначаются в структуре органа, имеют центры размножения; появляются и увеличиваются в числе плазматические клетки. В возрасте 4-8 лет продолжается формирование лимфоидных узелков, смещение их под капсулу узла (становятся отчетливо различимыми корковое и мозговое вещества), образуются мозговые тяжи и трабекулы. К половой зрелости завершается формирование органа в целом. С возрастом в лимфатическом узле постепенно исчезают лимфоидные узелки и их центры размножения, снижается фагоцитарная активность макрофагов, разрастается соединительная ткань трабекул, происходят атрофия органа и замещение жировой тканью.
Селезенка - периферический орган кроветворной и иммунной систем. Кроме выполнения кроветворной и защитной функций, она участвует в процессах гибели эритроцитов, вырабатывает вещества, угнетающие эритропоэз, депонирует кровь.
Развитие. Закладка селезенки происходит на 5-й неделе эмбриогенеза образованием плотного скопления мезенхимы. Последняя дифференцируется в ретикулярную ткань, прорастает кровеносными сосудами, заселяется кроветворными стволовыми клетками. На 5-м месяце эмбриогенеза в селезенке отмечаются процессы миелопоэза, которые к моменту рождения сменяются лимфоцитопоэзом. Мезотелий в составе капсулы развивается из висцерального листка спланхнотома.
Строение. Селезенка снаружи покрыта капсулой, состоящей из мезотелия, соединительной ткани и гладких миоцитов (рис. 17.5).
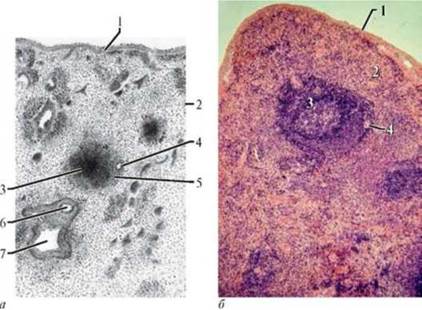
Рис. 17.5. Строение селезенки: а - схема; б - микрофотография, окраска гематоксилином и эозином (увеличение малое): 1 - капсула; 2 - красная пульпа; 3 - лимфоидный узелок; 4 - центральная артерия; 5 - Т-зависимая зона; 6 - трабекулярная артерия; 7 - трабекулярная вена
От капсулы внутрь отходят перекладины - соединительнотканные трабекулы, анастомозирующие между собой. В них также есть гладкие миоциты. Капсула и трабекулы образуют опорно-сократительный аппарат селезенки. Он составляет 5-7% объема этого органа. Между трабекулами находится пульпа (мякоть) селезенки, основу которой составляет ретикулярная ткань. Кроветворные стволовые клетки определяются в селезенке в количестве примерно 3,5 на 105 клеток. Различают белую и красную пульпы селезенки.
Белая пульпа селезенки - это совокупность лимфоидной ткани, которая образована лимфоидными узелками (В-зависимые зоны) и лимфатическими периартериальными влагалищами (Т-зависимые зоны). Белая пульпа при макроскопическом изучении срезов селезенки имеет вид светло-серых округлых образований, составляющих 1/5 часть органа и распределенных диффузно по площади среза.
Лимфатическое периартериальное влагалище окружает артерию после выхода ее из трабекулы. В его составе обнаруживаются антигенпредставляющие (дендритные) клетки, ретикулярные клетки, лимфоциты (преимущественно Т-хелперы), макрофаги, плазматические клетки. Лимфатические узелки без герминативного центра (первичные) по своему строению аналогичны таковым в лимфатических узлах. Это округлое образование в виде скопления малых В-лимфоцитов, прошедших антигеннезависимую дифференцировку в костном мозге, которые находятся во взаимодействии с ретикулярными и дендритными клетками. Лимфатический узелок с герминативным центром и короной (вторичный) возникает при антигенной стимуляции и наличии Т-хелперов. В короне присутствуют В- лимфоциты, макрофаги, ретикулярные клетки, а в герминативном центре - В-лимфоциты на разных стадиях пролиферации и дифференцировки в плазматические клетки, Т-хелперы, дендритные клетки и макрофаги.
Краевая, или маргинальная, зона узелков окружена синусоидными капиллярами, стенка которых пронизана щелевидными порами. В эту зону Т-лимфоциты мигрируют по гемокапиллярам из периартериальной зоны и поступают в синусоидные капилляры.
Красная пульпа - совокупность разнообразных тканевых и клеточных структур, составляющих всю оставшуюся массу селезенки, за исключением капсулы, трабекул и белой пульпы. Основные структурные компоненты ее - ретикулярная ткань с клетками крови, а также кровеносные сосуды синусоидного типа, образующие причудливые лабиринты за счет разветвлений и анастомозов. В ретикулярной ткани красной пульпы различают два вида ретикулярных клеток - малодифференцированные и клетки фагоцитирующие, в цитоплазме которых много фагосом и лизосом. Между ретикулярными клетками располагаются форменные элементы крови - эритроциты, зернистые и незернистые лейкоциты. Часть эритроцитов находится в состоянии дегенерации или полного распада. Такие эритроциты фагоцитируются макрофагами, переносящими затем железосодержащую часть гемоглобина в красный костный мозг для эритроцитопоэза.
Синусы в красной пульпе селезенки представляют собой часть сосудистого русла, начало которому дает селезеночная артерия. Далее следуют сегментарные, трабекулярные и пульпарные артерии. В пределах лимфоидных узелков пульпарные артерии называются центральными. Затем идут кисточковые артериолы, артериальные гемокапилляры, венозные синусы, пульпарные венулы и вены, трабекулярные вены и т.д. В стенке кисточковых артериол есть утолщения, называемые гильзами, муфтами или эллипсоидами. Мышечные клетки здесь отсутствуют. В эндотелиоцитах, выстилающих просвет гильз, обнаружены тонкие миофиламенты. Базальная мембрана очень пористая. Основную массу утолщенных гильз составляют ретикулярные клетки, обладающие высокой фагоцитарной активностью. Полагают, что артериальные гильзы участвуют в фильтрации и обезвреживании артериальной крови, протекающей через селезенку.
Венозные синусы образуют значительную часть красной пульпы. Их диаметр 12-40 мкм. Стенка синусов выстлана эндотелиоцитами, между которыми имеются межклеточные щели размером до 2 мкм. Они лежат на прерывистой базальной мембране, содержащей большое количество отверстий диаметром 2-6 мкм. В некоторых местах поры в базальной мембране совпадают с межклеточными щелями эндотелия. Благодаря этому устанавливается прямое сообщение между просветом синуса и ретикулярной тканью красной пульпы, и кровь из синуса может выходить в окружающую их ретикулярную строму. Важное значение для регуляции кровотока через венозные синусы имеют мышечные сфинктеры в стенке синусов в месте их перехода в вены. Имеются также сфинктеры в артериальных капиллярах. Сокращения этих двух видов мышечных сфинктеров регулируют кровенаполнение синусов. Отток крови из микроциркуляторного русла селезенки происходит по системе вен возрастающего калибра.
Особенностью трабекулярных вен является отсутствие в их стенке мышечного слоя и сращение наружной оболочки с соединительной тканью трабекул. Вследствие этого трабекулярные вены постоянно зияют, что облегчает отток крови.
Реактивность, регенерация и возрастные изменения. Гистологические особенности строения селезенки, ее кровоснабжения, наличие в ней большого количества крупных расширенных синусоидных капилляров, отсутствие мышечной оболочки в трабекулярных венах следует учитывать при травме. При повреждении селезенки многие сосуды пребывают в зияющем состоянии, и кровотечение при этом самопроизвольно не останавливается. Эти обстоятельства могут определить тактику хирургических вмешательств. Ткани селезенки очень чувствительны к действию проникающей радиации, к интоксикациям и инфекциям. Вместе с тем они обладают высокой регенерационной способностью. Восстановление селезенки после травмы происходит в течение 3 -4 нед за счет пролиферации клеток ретикулярной ткани и образования очагов лимфоидного кроветворения.
У новорожденного капсула селезенки тонкая, трабекулы короткие, отсутствуют четкие очертания лимфоидных узелков, что обусловлено отсутствием контакта новорожденного с антигенами. Рост трабекул селезенки и оформление лимфоидных узелков осуществляются в первые годы жизни ребенка. В процессе старения в селезенке отмечается атрофия белой и красной пульпы, уменьшается количество лимфоидных узелков, в капсуле и трабекулах наблюдается утолщение коллагеновых волокон.
Иммунитет (от лат. immunitas - освобождение, избавление от чего-либо) - невосприимчивость организма к инфекционным и неинфекционным агентам и веществам, обладающим антигенными свойствами. Различают иммунитет врожденный, нестерильный, стерильный, поствакцинальный, клеточный, гуморальный и др. В реакциях иммунитета главным образом участвуют специализированные лимфоциты, плазматические клетки и макрофаги.
Чужеродные для организма человека белки, полисахариды и их синтетические аналоги, имеющие бактериальное, тканевое, вирусное или искусственное происхождение, называются антигенами. При их попадании в организм возникает иммунный ответ, что выражается в продукции антител, появлении клеток-эффекторов и формировании иммунологической памяти на данный чужеродный объект.
Антитело - это молекулы белка, присутствующие в сыворотке крови, которые обладают способностью прочно связываться с антигеном. Для каждого антигена существует свое антитело. Природа создала несколько химически различных видов (классов) антител, или иммуноглобулинов: IgG, IgA, IgM, IgD, IgE. Наиболее часто встречающаяся разновидность - IgG - активен в нейтрализации бактериальных токсинов и в защите от вирусов. Слюна и слизь богаты IgM (он легко преодолевает клеточные барьеры). IgA располагается на поверхности слизистых оболочек, предупреждает проникновение инфекции во внутреннюю среду организма. Другой белковый компонент крови - опсонины, обволакивая бактерии, облегчает их фагоцитирование. Группа белков сыворотки крови - комплемент фиксируется в комплексе антиген- антитело, что приводит к активации разрушающих стенку бактерии ферментов.
В зависимости от механизма уничтожения антигена различают клеточный и гуморальный иммунитет. Ведущие клетки, ответственные за специфическую иммунореактивность, - это Т- и В- лимфоциты. Иммунокомпетентность Ти В-лимфоциты приобретают в результате генетически запрограммированной антигеннезависимой пролиферации и дифференцировки, которая совершается в тимусе для Т-лимфоцитов и в красном костном мозге для В-лимфоцитов (см. выше). Под влиянием факторов микроокружения и в результате генетической изменчивости участков генома, ответственных за молекулярную организацию вариабельной части клеточного рецептора, эти клетки на своей поверхности приобретают специальные рецепторы, реагирующие с антигенами. Согласно клонально-селекционной теории в организме существует множество Т- и В-лимфоцитов (1012 лимфоцитов), запрограммированных отвечать на один определенный антиген. Вновь образованные лимфоциты, несущие на своей поверхности рецепторы к строго специфическим антигенам, незначительны по численности. Эти клетки называются «наивными». Для иммунного ответа необходимо иметь большое число копий эффекторных клеток, поэтому в периферических иммунных и кроветворных органах происходят антигензависимая пролиферация и дифференцировка Т- и В-лимфоцитов. Пролиферации предшествует бласттрансформация лимфоцитов - явление, впервые описанное А.А. Максимовым. После пролиферации бласттрансфор-мированных Т-лимфоцитов возникают:
1) Т-клетки-киллеры (цитотоксические) - основные эффекторные клетки иммунитета, они разрушают чужеродные клетки-мишени и обеспечивают генетическое постоянство внутренней среды организма, защищая его от вторжения чужеродных клеток, новообразований, аутоиммунных заболеваний;
2) Т-клетки-хелперы, участвующие в процессах межклеточной кооперации с В-лимфоцитами, без чего невозможна трансформация В-лимфоцитов в плазмоциты;
3) Т-клетки-супрессоры, блокирующие антителообразование В-лимфоцитами при аутоиммунных реакциях.
Микроокружением для лимфоцитов Т-зоны являются особые макрофаги - антигенпредставляющие (дендритные) клетки. Эти клетки распознают и фагоцитируют антигены и в виде фрагментов (эпитопов) выделяют их на поверхности своих отростков. Благодаря этому облегчается распознавание антигена лимфоцитами, что и индуцирует пролиферацию Т-лимфоцитов. Помимо иммунокомпетентных клеток и макрофагов, в иммунных реакциях принимают участие тучные клетки (тканевые базофилы) и эозинофильные гранулоциты. Первые выделяют гистамин, серотонин и гепарин, оказывающие стимулирующее действие на клетки, которые участвуют в иммунных реакциях. Вторые разрушают и фагоцитируют комплексы антиген-антитело, выполняя тем самым свойственную им дезинтоксикационную функцию.
Реактивное свойство организма, которое проявляется на клеточном уровне организации живого и заключается в распознавании «своих и чужих» клеток, обеспечивается Т-лимфоцитами. Молекулярные механизмы «узнавания» заключаются в том, что практически все клетки организма позвоночных экспрессируют молекулу гистосовместимости, которая находится на поверхности клетки и доступна для опознавания специализированными клетками иммунной системы. В связи с тем, что молекула в составе клетки одного организма, будучи внесенной в другой, вызывает реакцию отторжения, она получила название антиген гистосовместимости, или главная молекула гистосовместимо-сти (I и II классов).
Молекула гистосовместимости I класса является гликопротеином и присутствует практически у всех соматических клеток (кроме эритроцитов и клеток ворсинчатого трофобласта). Молекула состоит из трех частей:
а) трансмембранного белка (тяжелой цепи), который пронизывает плазмолемму клетки и имеет внутриклеточную, цитоплазматическую и внеклеточную части (домены);
б) белка малой молекулярной массы (эпитопа), расположенного между петлями внеклеточной части трансмембранного белка;
в) периферического белка (см. главу 4).
Гены, кодирующие молекулярную организацию трансмембранного белка, расположены на 6-й хромосоме в области, которая получила название главный комплекс гистосовместимости (англ. Major Histocompatibility Complex -МНС).
Основная биологическая роль молекулы гистосовместимости I класса - дать возможность Т-лимфоцитам с помощью своих Т-клеточных рецепторов распознать «свои и чужие» клетки. Информацию об этом несет разнообразный по составу и последовательности расположения аминокислот низкомолекулярный белок - эпитоп. Это фрагмент, возникший из белков, присутствующих внутри клетки. Среди них могут быть:
а) фрагменты собственных белков, тогда они не вызывают ответной реакции со стороны специализированных Т-лимфоцитов;
б) молекулы белка, кодируемые вирусом;
в) молекулы белка, кодируемые мутантным геномом раковой клетки организма.
В случае появления двух последних происходит реакция клетки, несущей чужеродный эпитоп, с Т- лимфоцитом, который называется цитотоксическим.
Цитотоксические лимфоциты имеют рецепторы, с помощью которых осуществляется мониторинг практически всех клеток организма (за исключением тех, которые отделены специальными гематотканевыми гистионами). Они имеют специфические рецепторы - Т-клеточные, с помощью которых взаимодействуют с эпитопом тканевой клетки, и особые рецепторы, представленные поверхностными гликопротеинами, которые выявляются монокло-нальными антителами CD8 (от англ. cluster of differentiation по номенклатуре, принятой в иммуноцитохимии рецепторов). Если Т-лимфоциты маркируются моноклональным антителом CD8, то они называются CD8+ Т-лимфоцитами, цитотоксическими, или киллерами. Последние связываются только с молекулой гистосовместимости I класса. В случае обнаружения чужеродного эпитопа происходит молекулярное взаимодействие в области контакта рецепторов, что является сигналом к запуску механизмов разрушения клетки, синтезирующей чужеродный белок. Это проявляется секрецией в межклеточное пространство белков - перфоринов, которые в виде трансмембранных белков встраиваются в плазмолемму чужеродной клетки, формируют поры, приводящие к набуханию и распаду клетки. Кроме того, цитотоксические лимфоциты способны активизировать своими биологически активными веществами ферменты апо-птоза как при проникновении их в клетку через поры, так и через рецепторы чужеродной клетки к индукторам апоптоза. Существуют и другие механизмы цитотоксического действия данной субпопуляции лимфоцитов на мишени.
В отличие от реакций клеточного типа, существует другой тип реакции иммунных клеток, выражающийся в выработке антител в жидкие среды организма. Рецепторная система клеток (макрофагов, В- и Т-лимфоцитов), участвующих в иммунных реакциях данного типа, представлена молекулами гистосовместимости II класса. Последняя состоит из двух трансмембранных белков, между петлями которых располагается фрагмент антигена - эпитоп, или антигенная детерминанта. В отличие от описанного выше процесса возникновения эпитопа в составе молекулы гистосовместимости I класса, во втором случае эпитоп появляется как результат двух процессов:
1) фагоцитоза антигена макрофагом (антигенпредставляющей клеткой), внутриклеточного взаимодействия антигена с лизосомами макрофага и возврата фрагмента антигена в виде эпитопа на клеточную поверхность;
2) рецепторно-опосредованного эндоцитоза В-лимфоцитами растворенного антигена, его модификации и возврата в виде эпитопа на клеточную поверхность.
Иными словами, если антиген поглощается макрофагом, то далее в цитоплазме он расщепляется на небольшие пептидные фрагменты, которые объединяются с молекулами гистосовместимости II класса и выводятся на клеточную мембрану. В таком виде комплекс модифицированного антигена с молекулой гистосовместимости II класса представляется Т-лимфоцитам.
Принципиальные отличия в организации молекулы гистосовместимости II класса заключаются в том, что не все клетки синтезируют данный класс молекул, а эпитоп имеет внеклеточное (чужеродное) происхождение.
С молекулой II класса могут взаимодействовать только те лимфоциты, которые имеют на своей поверхности другой - специальный рецептор класса CD4.
К ним относятся CD4+ Т-лимфоциты, или Т-хелперы. Последние вместе с анти-генпредставляющими клетками и В-лимфоцитами отвечают за формирование иммунной реакции, которая проявляется в синтезе иммуноглобулинов, или антител, циркулирующих в крови и тканевой жидкости (гуморальный иммунитет).
Межклеточные взаимодействия протекают следующим образом. Т-хелпер с помощью двух своих рецепторов - Т-клеточного (молекулы II класса) и CD4 связывается с молекулой II класса гистосовместимости макрофага (анти-генпредставляющей клетки). Если Т-клеточный рецептор с одной стороны и эпитоп молекулы II класса макрофага с другой стороны не комплементарны (то есть взаимно не соответствуют друг другу по химическим свойствам), то происходит активация и пролиферация Т- хелпера. Аналогично происходит взаимодействие хелпера с В-лимфоцитом. Если эпитоп молекулы II класса В-лимфоцита не соответствует Т-клеточному рецептору хелпера, то последний вырабатывает лимфокины, которые вызывают пролиферацию и дифференцировку В-лимфоцита в плазматические клетки. Последние специализированы на синтезе в большом количестве клеточных рецепторов конкретного антигена и секреции рецепторов в виде иммуноглобулинов в кровь, лимфу, тканевую жидкость. В свою очередь, рецепторы связывают циркулирующие в жидкостях организма антигены, предупреждают дальнейшее развитие заболевания. Итак, иммуноглобулины - это секретируемые плазматическими клетками клеточные рецепторы (восприниматели), связывающиеся с конкретными антигенами. CD4+ Т-лимфоциты называются помощниками (хелперами), так как без их участия невозможна активация, пролиферация и дифференцировка В-лимфоцитов в плазматические клетки.
Таким образом, иммунный комплекс органов действует как целое. Благодаря взаимодействию с эндокринной, нервной системами и местными факторами регуляции происходит пролиферация и дифференцировка лимфоидных клеток, упорядоченная их миграция, осуществляемая через кровь и лимфу. Медленная миграция клеток характерна для стволовых клеток, Т- и В-лимфоцитов, заселяющих периферические органы иммуногенеза. Быстрая миграция характерна для рециркулирующих долгоживущих лимфоцитов памяти. Количество рециркулирующих клеток составляет 1010. Они мигрируют из крови в периферические органы иммуногенеза и обратно. Рециркуляция Т-лимфоцитов обеспечивает поддержание иммунного гомеостазиса.
Контрольные вопросы
1. Источники развития органов кроветворения и иммунной защиты.
2. Биологический смысл антигеннезависимой и антигензависимой пролиферации и дифференцировки лимфоцитов.
3. Реактивность, регенерация и возрастные изменения органов кроветворения и иммунной защиты.
4. Клеточные взаимодействия в иммунном ответе.