
В организме человека органы пищеварительного тракта осуществляют механическую переработку и химическое расщепление компонентов пищи до более простых соединений, способных всасываться в кровь и лимфу и усваиваться всеми клетками организма для поддержания их жизнедеятельности и выполнения специальных функций.
Развитие. Органы пищеварительного тракта являются производными эмбриональной пищеварительной трубки, в которой различают три отдела. Из переднего (головного) отдела развиваются органы, морфофункционально связанные с полостью рта, глотка и пищевод; из среднего (туловищного) - желудок, тонкая кишка, толстая кишка, печень и желчный пузырь, поджелудочная железа; из заднего - каудальная часть прямой кишки. Перечисленные выше органы являются частью большой группы органов внутренней среды человека, которые обеспечивают метаболические процессы на всех уровнях структурной организации живого.
Первичная эмбриональная кишечная трубка вначале слепо заканчивается на головном и хвостовом концах и соединяется с желточным мешком посредством желточного стебелька. В составе головного конца эмбриональной кишечной трубки находится материал прехордальной пластинки (см. главу 5). На 3-й неделе на головном конце зародыша появляется впячивание эктодермы (ротовая бухта, стомодеум), которое растет навстречу слепому концу первичной эмбриональной кишечной трубки. Дно ротовой бухты, соприкасаясь со стенкой первичной кишки, образует ротовую перепонку. На 3-4-й неделе эмбриогенеза ротовая перепонка прорывается. Позднее формируется анальная бухта (проктодеум), которая соприкасается со стенкой слепого конца каудальной части первичной кишечной трубки и формирует клоачную перепонку. Прорыв клоачной перепонки происходит на 3-м - в начале 4-го месяца. Кишечная трубка становится открытой с обоих концов. В краниальной части передней кишки появляются пять пар жаберных карманов. Эктодерма ротовой и анальной бухт служит исходным материалом для развития многослойного плоского эпителия преддверия полости рта и каудальной части прямой кишки. Из материала головной части первичной кишечной трубки развивается многослойный эпителий кожного типа полости рта, глотки и пищевода. Кишечная энтодерма является источником образования эпителия слизистой оболочки и желез гастроэнтерального отдела пищеварительной трубки. Соединительнотканные и гладкомышечные тканевые элементы пищеварительных органов формируются из мезенхимы, а однослойный плоский эпителий серозной оболочки - из висцерального листка спланхнотома. Поперечно-исчерченная мышечная ткань, присутствующая в составе отдельных органов пищеварительного тракта, развивается из миотомов. Элементы нервной системы являются производными нервной трубки и нервного гребня.
Общий план строения. Стенка пищеварительной трубки на всем протяжении имеет сходный план строения. Ее образуют следующие оболочки: слизистая с подслизистой основой, мышечная и наружная (серозная или адвентициальная). Слизистая оболочка состоит из эпителия, собственной соединительнотканной пластинки и мышечной пластинки. Называется эта оболочка слизистой в связи с тем, что ее эпителиальная поверхность постоянно увлажнена слизью, выделяемой слизистыми клетками и многоклеточными слизистыми железами. Подслизистая основа представлена рыхлой соединительной тканью. В ней находятся кровеносные и лимфатические сосуды, нервные сплетения и скопления лимфоидной ткани. Мышечная оболочка образована, как правило, двумя слоями гладкой мышечной ткани (внутренним - циркулярным и наружным - продольным). В межмышечной соединительной ткани проходят кровеносные и лимфатические сосуды. Здесь же располагается нервное сплетение. Наружная оболочка бывает или серозной, или адвентициальной. Серозная оболочка состоит из мезотелия и соединительнотканной основы. Адвентициальная оболочка образована только рыхлой соединительной тканью.
Органы, морфофункционально связанные с полостью рта (губы, щеки, десны, зубы, язык, слюнные железы, твердое нёбо, мягкое нёбо, миндалины), выполняют следующие основные функции: механическая переработка пищи; химическая обработка пищи (смачивание слюной, переваривание углеводов амилазой и мальтозой слюны); дегустация пищи с помощью органа вкуса; глотание и проталкивание пищи в пищевод. Миндалины выполняют защитную функцию, препятствуя проникновению в организм микробов, участвуют в формировании иммунного ответа организма.
13.1.1. Полость рта, губы, щеки, зубы, десны, язык
Полость рта. Слизистая оболочка полости рта состоит из многослойного плоского эпителия и собственной соединительнотканной пластинки. Степень развития этих тканевых структур неодинакова в различных участках слизистой оболочки. Поверхность эпителия постоянно увлажняется за счет слюны, которая выделяется многочисленными мелкими и крупными слюнными железами полости рта. Поверхностный слой эпителия образован плоскими клетками, а в отдельных местах - роговыми чешуйками. Эти эпителиальные клетки и роговые чешуйки слущиваются в полость рта. Обновление клеточного состава эпителия происходит довольно интенсивно (за 4-6 сут). В целом за каждые пять минут с поверхности эпителия полости рта слущивается до 0,5 млн клеток. Столько же клеток образуется вновь в результате деления базальных эпителиоцитов. Кроме ведущего эпителиального клеточного дифферона, в эпителии слизистой оболочки полости рта встречаются меланоци-ты, лимфоциты, клетки Лангерганса и клетки Меркеля.
Губы. Эпителий в области губ постепенно переходит от эпидермиса (в кожной части) с типичным строением к эпителию слизистой оболочки полости рта. В губе различают кожную, промежуточную (переходную, красную кайму) и слизистую части (рис. 13.1).
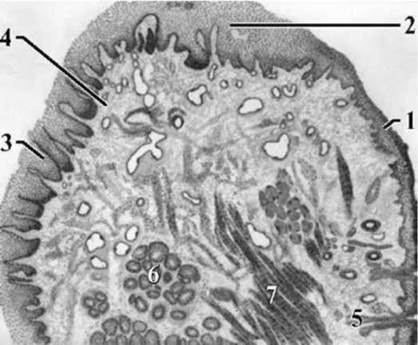
Рис. 13.1. Схема строения губы: 1 - многослойный плоский эпителий кожной части; 2 - то же промежуточной части; 3 - то же слизистой части; 4 - собственная пластинка слизистой оболочки; 5 - луковица волоса; 6 - слюнные железы; 7 - поперечнополосатые мышечные волокна
Кожная часть губы имеет строение тонкой кожи. В промежуточной части эпителий отличается значительной толщиной (рис. 13.2). В эпителий вдаются высокие соединительнотканные сосочки, в которых находятся многочисленные капилляры. Протекающая в них кровь просвечивает через тонкий слой эпителия на вершине сосочка и придает этой части губ красноватый цвет. Здесь отсутствуют потовые железы, а по краям губ сохраняются сальные железы.
В слизистой части губ собственная пластинка слизистой оболочки также образует сосочки, но менее высокие, тем таковые в промежуточной части губы. В подслизистой основе располагаются губные железы смешанного (слизисто-белкового) характера, артерии и венозное сплетение (рис. 13.3).
Щеки. Основу щеки составляет поперечнополосатая мышечная ткань. Снаружи щека имеет кожный покров, изнутри - выстлана слизистой оболочкой, по строению сходной с таковой у губ. В подслизистой основе располагаются концевые отделы смешанных (белково-слизистых) щечных желез. В толще щечной мышцы также располагаются концевые отделы смешанных желез (рис. 13.4).
Десны. Слизистая оболочка десен выстлана многослойным плоским частично ороговевающим эпителием. В эпителий вдаются высокие соединительнотканные сосочки. Мышечная пластинка слизистой оболочки здесь отсутствует. С помощью плотных пучков коллагеновых волокон собственной пластинки слизистой оболочки десна неподвижно соединена с костями верхней и нижней челюстей. В области прилегания десны к зубу формируется дес-невая бороздка. Эпителий срастается с кутикулой зуба, образуя зубодесневое соединение (рис. 13.5). Десна содержит многочисленные свободные и инкапсулированные нервные окончания.
Зубы. Зубы участвуют в механической обработке пищи: плоские резцы и клыки конической формы откусывают пищу, малые и большие коренные зубы с коронками кубической формы и жевательными буграми перетирают ее при еде. Зубы имеют важное значение для артикуляции.
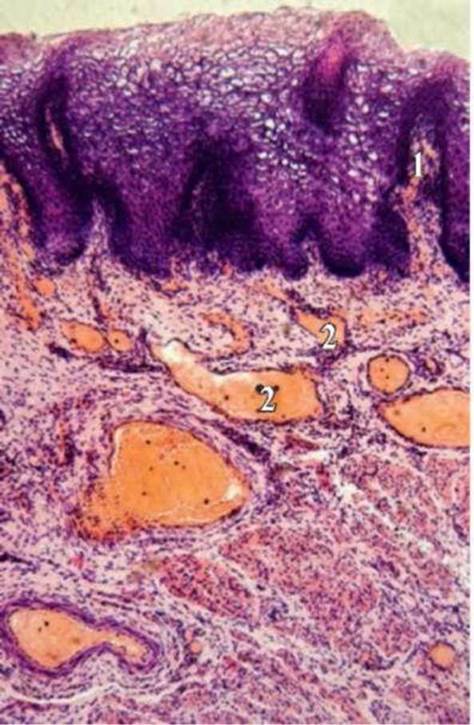
Рис. 13.2. Строение промежуточной части губы: 1 - в многослойный плоский эпителий вдаются высокие соединительнотканные сосочки; 2 - кровеносные сосуды в собственной пластинке слизистой оболочки; микрофотография, окраска гематоксилином и эозином (увеличение малое)

Рис. 13.3. Строение слизистой части губы: 1 - многослойный плоский эпителий; 2 - кровеносные сосуды в собственной пластинке слизистой оболочки; 3 - губные железы, расположенные в подслизистой основе; микрофотография, окраска гематоксилином и эозином (увеличение малое)
Развитие. У человека различают две смены зубов - выпадающие, или молочные (20), и постоянные (32). Развитие выпадающих зубов начинается в конце 2-го месяца эмбриогенеза. В это время эпителий, выстилающий ротовую бухту, образует зубной валик. Последний врастает в подлежащую мезенхиму и в результате возникает эпителиальная пластинка. От нее отщепляется дугообразная зубная пластинка. Вдоль свободного края зубной пластинки по числу закладок зубов возникают колбовидные эпителиальные выпячивания - эмалевые органы. Вокруг последних происходит уплотнение мезенхимных клеток - это появляются зубные мешочки.
Взаимодействие двух эмбриональных зачатков приводит к изменению формы зубного зачатка - она постепенно трансформируется в структуру в виде бокала, внутри которого концентрируются мезенхимные клетки в форме сосочка (рис. 13.6). Последний оказывает индуктивное влияние на дифференцировку клеток эпителиального зубного бокала, в котором топографически выделяются внутренний и наружный эмалевый эпителий и клетки промежуточного слоя. Внутренний эмалевый эпителий обращен к мезенхимному сосочку, наружный образует «стенку» зубного бокала и тонкой клеточной ножкой остается некоторое время связанным с эпителием полости рта. Клетки промежуточного слоя располагаются между двумя первыми, приобретают звездчатую форму и оттесняются друг от друга накапливающейся здесь жидкостью. Так формируется пульпа эмалевого органа, которая позднее примет участие в образовании кутикулы эмали.
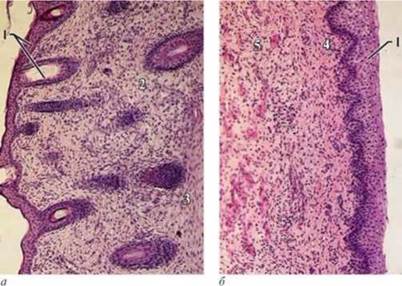
Рис. 13.4. Строения кожной (а) и слизистой (б) части щеки: 1а - многослойный плоский ороговевающий эпителий кожи с волосам; 1б - многослойный плоский неороговевающий эпителий слизистой оболочки; 2 - сетчатый слой дермы; 3 - щечная мышца; 4 - собственная пластинка слизистой оболочки; 5 - подслизистая основа; микрофотография, окраска гематоксилином и эозином (увеличение малое)

Рис. 13.5. Строение десны (а) и зубодесневой бороздки (б): 1 - многослойный плоский эпителий десны; 2 - соединительнотканные сосочки; 3 - пучки плотной соединительной ткани; 4 - зуб; 5 - зубодесневая бороздка; микрофотография, окраска гематоксилином и эозином, увеличение среднее (а) и малое (б)
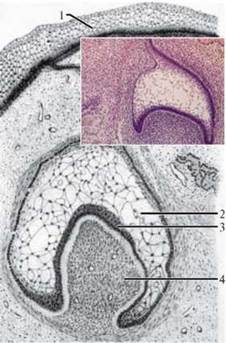
Рис. 13.6. Схема закладки зуба: 1 - многослойный плоский эпителий полости рта; 2 - эпителиальный зубной бокал (эмалевый орган); 3 - энамелобласты; 4 - мезенхимный зубной сосочек; врезка - микрофотография, окраска гематоксилином и эозином (увеличение малое)
Внутренний эмалевый эпителий отделяется от мезенхимного сосочка базальной мембраной. Его клетки дифференцируются в энамелобласты - клетки - образователи эмали. Образование базальной мембраны индуцирует дифференцировку расположенных рядом мезенхимных клеток в дентинобласты - образователи дентина. Последние, в свою очередь, влияют на развитие энамелобластов.
С 4-го месяца внутриутробной жизни начинается развитие тканей зуба. Энамелобласты приобретают столбчатую форму, в них постепенно происходит перемещение ядер из базальной части клеток в апикальную, поскольку в базальных частях клеток накапливаются рибосомы. В дальнейшем здесь появляются электронно-плотные гранулы, окруженные оболочкой. Содержимое гранул путем мерокринной секреции выходит в межклеточное пространство, где происходит его обызвествление и удаление органических соединений. По мере накопления вещества эмали энамелобласты смещаются от дентина на периферию. Так формируются эмалевые призмы, слой которых составляет эмаль зуба. Каждый энамелобласт вырабатывает одну эмалевую призму.
Клетки, прилежащие к энамелобластам, - дентинобласты, опережая развитие эмалевой призмы, начинают секретировать дентин, и тела клеток отодвигаются внутрь мезенхимного мешочка. По мере развития зуба толщина эмали и дентина увеличивается. Энамелобласты при этом отодвигаются наружу, а тела дентинобластов - внутрь развивающегося зуба (рис. 13.7). В необызвествленный дентин внедряются отростки дентинобластов и замуровываются в нем.
К моменту прорезывания выпадающих зубов ядросодержащие части энаме-лобластов исчезают, остаются лишь тесно прилежащие друг к другу эмалевые призмы, покрытые кутикулой, образованной клетками промежуточного слоя зубного бокала и клетками наружного эмалевого эпителия. Клеточная ножка, связывающая зачаток зуба с эпителием полости рта, фрагментируется и полностью исчезает. Зубной зачаток оказывается погруженным в костную ткань челюсти. Формирование эмали и дентина распространяется от вершины будущего зуба к боковым поверхностям. Клетки зубного мешочка дифференцируются в цементобласты, и незадолго до прорезывания зуба в области будущих корней формируют цемент. Клетки центральных участков мезенхимных сосочков образуют пульпу (мякоть) зуба - внутреннюю рыхлую соединительную ткань зуба, богатую сосудами и нервами. Из клеток наружного слоя мезенхимного зубного мешочка образуется зубная связка (периодонт), соединяющая зуб с альвеолой челюсти. Зубные костные альвеолы формируются из окружающей зубные зачатки мезенхимы параллельно с формированием зубов. Таким образом, в составе зуба эмаль имеет эпителиальную природу. Все остальные части зуба (дентин, цемент, пульпа зуба), а также связочный аппарат - это производные мезенхимы.

Рис. 13.7. Гистогенез зуба: а - схема: 1 - энамелобласты; 2 - эмаль; 3 - дентинобласты; 4 - дентин; 5 - пульпа зуба; б - деталь схемы а: 1 - энамелобласты; 2 - эмаль; 3 - дентин; 4 - дентинобласты; в - микрофотография (обозначения см. на рис. 13.7, а), окраска гематоксилином и эозином (увеличение малое)
Закладка постоянных зубов происходит на 4-5-м месяцах эмбриогенеза, когда от зубной пластинки начинают формироваться вторые эмалевые зачатки. Развитие их происходит принципиально так же, как и выпадающих зубов.
Строение. В составе зуба различают коронковую, шеечную и корневую части. Коронка выступает над десной, а шейка и корень погружены в ткани зубной альвеолы. Внутри зуба находится полость, заполненная пульпой. Коронку зуба образуют эмаль, дентин и пульпа.
Эмаль - производное дифферона энамелобластов. Структурными элементами эмали являются эмалевые призмы диаметром 3-5 мкм. Они имеют S-образно изогнутый ход. В состав призмы входят органические вещества в виде ультрамикроскопической фибриллярной сети (филаментов промежуточного типа), углеводы, кристаллы минеральных солей (кальция фосфат в форме гидроксиапатита, кальция фторид). Доля последних составляет 96- 97% массы эмали. Эмалевые призмы объединяются с помощью менее обызвествленного межпризменного вещества и покрывают коронку зуба в виде эмали (рис. 13.8, а). По твердости эмаль близка к кварцу. Снаружи эмаль покрыта тонкой кутикулой, которая постепенно стирается в результате пережевывания при приеме пищи. Однако кутикула сохраняется в области дна десневой борозды. Несмотря на то, что эмаль - это неклеточная структура, которая не содержит кровеносных сосудов, для нее характерен обмен веществ. Транспорт веществ в эмаль осуществляется эмалевой жидкостью через межпризменные необызвествленные пространства. При недостатке питательных веществ и витаминов эмаль разрушается.
Дентин - ведущая ткань зуба, состоит из коллагеновых фибрилл и склеивающего их вещества с большим количеством солей кальция. В дентине минеральные соли составляют 72%, а органические вещества - 28%. Вещество дентина пронизано дентинными канальцами, или трубочками. В них проходят длинные отростки дентинобластов, расположенных в периферическом слое пульпы зуба (рис. 13.8, б).
В дентинных канальцах проходят также безмиелиновые нервные волокна. За счет этих канальцев осуществляются трофические процессы. В обмене веществ дентина большое значение имеют так называемые интерглобулярные пространства - необызвествленные участки в виде шарообразных полостей. Благодаря таким участкам граница между дентином и эмалью становится неровной, фестончатой, что обеспечивает прочное соединение двух тканей. Между дентинобластами, располагающимися в периферических участках пульпы, и дентином находится полоса необызвествленного матрикса, называемая предентином. За счет последующего отложения солей в предентине происходит аппозиционный рост дентина и рост зуба.
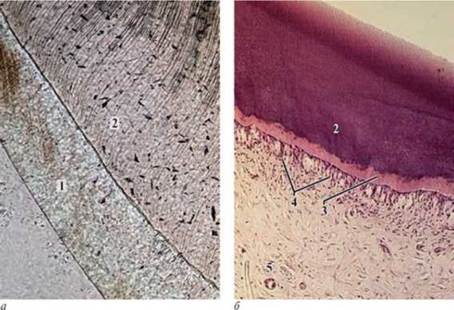
Рис. 13.8. Строение зуба: а - шлиф зуба, не окрашен; б - декальцинированный зуб, окраска гематоксилином и эозином (увеличение среднее): 1 - эмаль; 2 - дентин; 3 - предентин; 4 - дентинобласты; 5 - пульпа зуба с кровеносными сосудами; микрофотографии
Цемент - своеобразная костная ткань, покрывающая шейку и корень зуба. В нем содержится 30% органических и 70% неорганических веществ. Различают две разновидности цемента: бесклеточный и клеточный. Бесклеточный цемент состоит из аморфного вещества и коллагеновых волокон, которые переходят в периодонт и далее в костную ткань альвеол челюстей, прочно закрепляя зуб в его ячейке.
Клеточный цемент содержит цементоциты и по строению соответствует ретикулофиброзной костной ткани. В составе цемента нет кровеносных сосудов, поэтому трофические процессы в нем обеспечиваются путем диффузии за счет кровоснабжения периодонта.
Пульпа зуба (зубная мякоть) располагается в полости зуба и в корневых каналах. Корневые каналы свободно открываются в зубную альвеолу (рис. 13.9, а). Пульпа зуба образована рыхлой соединительной тканью. Периферическое положение в пульпе занимают дентинобласты. В промежуточном слое и в центре пульпы зуба находятся адвентициальные клетки, фибробласты, макрофаги, аргирофильные и коллагеновые волокна. В пульпе зуба разветвляются многочисленные кровеносные сосуды, а также нервные волокна с чувствительными нервными окончаниями.
С возрастом уменьшается содержание органических веществ в эмали, дентине и цементе зуба, а в связи с нарастающими склеротическими изменениями сосудов пульпы ухудшаются кровоснабжение и трофика всех его частей.

Рис. 13.9. Строение зуба: а - корень зуба: 1 - дентин; 2 - пульпа зуба; б - зуб в костной альвеоле: 1 - дентин; 3 - соединительная ткань периодонта; 4 - костная ткань зубной альвеолы; микрофотография декальцинированного зуба, окраска гематоксилином и эозином (увеличение малое)
Зубодесневое соединение образуют ткани периодонта и эпителий десны. Толстые пучки коллагеновых волокон периодонта укрепляют зуб в костной альвеоле и сглаживают давление твердой пищи на зуб при жевании (рис. 13.9, б).
Волокна периодонта проникают как в цемент зуба, так и в кость альвеолы. Периодонт хорошо иннервирован.
Пародонт - это совокупность структур, которые обеспечивают фиксацию и опору зуба. Пародонт включает десну, периодонт, кость альвеолы.
Репаративная регенерация зуба возможна лишь в ограниченных пределах. Эмаль после повреждения не восстанавливается. Дентин образуется медленно и в очень небольшом количестве за счет дифференцировки дентинобластов. Цемент зуба регенерирует слабо.
Язык. Это мышечный орган, который участвует в механической обработке и проглатывании пищи, ее вкусовом восприятии и в артикуляции. Основу языка составляет поперечнополосатая мышечная ткань скелетного типа, волокна которой располагаются в трех взаимно перпендикулярных плоскостях. Такое расположение мышечных волокон и прикрепление языка только в области его корня создают условия для его свободных движений, что важно для членораздельной речи (артикуляции). Например, врожденная короткая уздечка языка затрудняет формирование речевых навыков у ребенка.
Язык покрыт слизистой оболочкой. На верхней и боковых поверхностях языка она сращена с мышцами, на нижней - переходит в подслизистую основу. Слизистая оболочка состоит из многослойного плоского частично ороговевающего эпителия и собственной пластинки, представленной рыхлой соединительной тканью. На дорсальной поверхности языка слизистая оболочка образует сосочки: нитевидные, грибовидные и желобоватые (рис. 13.10, 13.11).
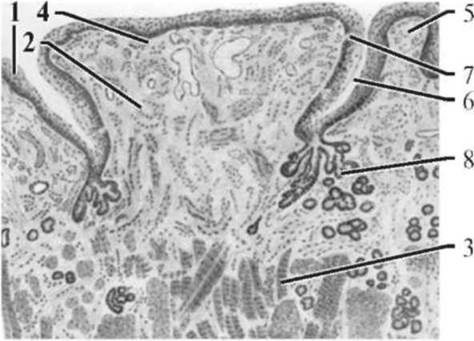
Рис. 13.10. Схема строения дорсальной поверхности языка: 1 - многослойный плоский частично ороговевающий эпителий слизистой оболочки; 2 - собственная пластинка слизистой оболочки; 3 - поперечнополосатая мышечная ткань 4 - желобоватый сосочек; 5 - валик; 6 - желобок; 7 - вкусовые луковицы; 8 - секреторные отделы слюнных белковых желез
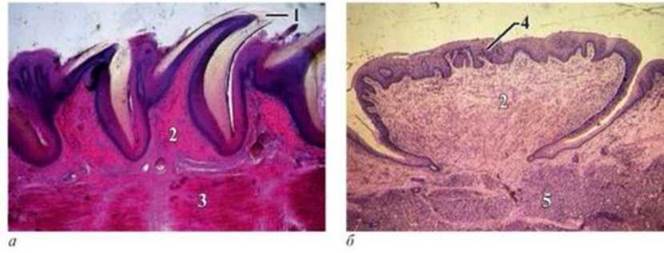
Рис. 13.11. Строение нитевидного (а) и желобоватого (б) сосочков языка: 1 - частично ороговевающий многослойный эпителий; 2 - собственная пластинка слизистой оболочки; 3 - мышца языка; 4 - многослойный плоский неороговевающий эпителий; 5 - секреторные отделы слюнных белковых желез; микрофотографии, окраска гематоксилином и эозином (увеличение малое)
У детей имеются еще листовидные сосочки. Все сосочки покрыты многослойным плоским эпителием и имеют основу из рыхлой соединительной ткани. Самые многочисленные - нитевидные сосочки языка. Они равномерно покрывают его верхнюю поверхность, концентрируясь вблизи границы с корнем языка, имеют коническую форму и не содержат вкусовых луковиц. На поверхности нитевидных сосочков эпителий частично ороговевает. При некоторых заболеваниях ороговение эпителия сосочков слизистой оболочки языка усиливается - образуется так называемый налет.
В грибовидных сосочках через эпителий просвечивают кровеносные капилляры, что придает им красный цвет. Грибовидные сосочки немногочисленны, располагаются на спинке языка, сосредоточиваясь на кончике и по краям языка. Они крупнее нитевидных, имеют форму гриба с широкой вершиной и узким основанием. В эпителии содержат небольшое количество вкусовых луковиц.
Желобоватые сосочки (сосочки, окруженные валиком) в количестве 6-12 расположены между телом и корнем языка (см. рис. 13.10 и 13.11). Это самые крупные сосочки языка. По форме они напоминают грибовидные сосочки, но крупнее и как бы «утоплены» в слизистую оболочку таким образом, что вокруг них образуются глубокие желобки. В этих желобках застаивается слюна с частицами пищи, что создает благоприятные условия для восприятия вкуса пищи клетками вкусовых луковиц, которых очень много в эпителии боковых поверхностей сосочков. На дне желобков открываются выводные протоки белковых желез Эбнера. Секрет этих желез промывает желобки и освобождает их от слущивающегося эпителия, скапливающейся здесь пищи и микробов.
Листовидные сосочки располагаются рядами по правому и левому краям языка. В пространства между сосочками открываются выводные протоки белковых желез, концевые отделы которых располагаются между мышечными волокнами языка. В эпителии боковых поверхностей листовидных сосочков залегают многочисленные вкусовые луковицы. У взрослых листовидные сосочки редуцируются, в местах расположения белковых желез развиваются жировая и лимфоидная ткани.
В языке находится три вида желез - белковые, слизистые, смешанные. Белковые железы - простые трубчатые разветвленные. Располагаются в основании желобоватых и листовидных сосочков, в толще языка. Слизистые железы - простые, трубчато-альвеолярные разветвленные железы, расположены в корне языка и вдоль его боковых поверхностей. Протоки открываются в крипты язычной миндалины. Смешанные железы залегают в переднем отделе языка. Их короткие протоки открываются вдоль складок слизистой оболочки под языком, секреторные отделы располагаются в мышечной ткани языка.
13.1.2. Большие слюнные железы
Помимо множества мелких слюнных желез, расположенных в слизистой оболочке щек, и желез языка, в полость рта открываются выводные протоки трех пар слюнных желез (околоушных, поднижнечелюстных и подъязычных), являющиеся производными эпителия слизистой оболочки полости рта.
Железы закладываются на 2-м месяце эмбриогенеза в виде парных плотных тяжей, врастающих в соединительную ткань. В начале 3-го месяца в закладках желез появляется просвет. От свободных концов тяжей отпочковываются многочисленные выросты, из которых формируются альвеолярные или трубчато-альвеолярные секреторные отделы. Их эпителиальная выстилка вначале образована малодифференцированными клетками. Позднее в секреторном отделе в результате дивергентной дифференцировки стволовой клетки появляются слизистые клетки (мукоциты) и белковые клетки (сероциты), а также миоэпителиоциты. В зависимости от количественного соотношения этих клеток, характера выделяемого секрета и других структурно-функциональных особенностей секреторные отделы бывают трех видов: белковые (серозные), слизистые (мукоидные) и смешанные (белково-слизистые).
В составе выводных путей слюнных желез различают внутридольковые вставочные и исчерченные слюнные протоки (слюнные трубки), междольковые протоки, а также общий выводной проток (рис. 13.12). По механизму секреции все большие слюнные железы являются мерокринными. Слюнные железы вырабатывают секреты, поступающие в полость рта. В различных железах секреторный цикл, состоящий из фаз синтеза, накопления и выделения секрета, протекает гетерохронно. Это обусловливает непрерывную секрецию слюны.

Рис. 13.12. Схема строения слюнной железы со смешанной секрецией: 1 - белковый секреторный отдел; 2 - слизистый секреторный отдел; 3 - смешанный секреторный отдел; 4 - полулуние из белковых экзокриноцитов; 5 - вставочный проток; 6 - исчерченный слюнной проток; 7 - межклеточные секреторные щели (по Браусу, из: Заварзин А.А., Щелкунов С.И., 1954, с изменениями)
Слюна представляет собой смесь секретов всех слюнных желез. Она содержит 99% воды, соли, белки, муцины, ферменты (амилаза, мальтаза, липаза, пептидаза, протеиназа и др.), бактерицидное вещество - лизоцим и др. В слюне содержатся слущенные клетки эпителия, лейкоциты и др. Слюна увлажняет пищу, облегчает жевание и глотание пищи, а также способствует артикуляции. Слюнные железы выполняют экскреторную функцию, выделяя из организма мочевую кислоту, креатинин, железо и др. Эндокринная функция слюнных желез связана с выработкой инсулиноподобного вещества, фактора роста нервов, фактора роста эпителия и других биологически активных соединений. У человека за сутки выделяется от 1 до 1,5 л слюны. Слюноотделение повышается при стимуляции парасимпатического и уменьшается при стимуляции симпатического отдела автономной нервной системы.
Околоушные железы. Это белковые слюнные железы, состоящие из многочисленных долек. В дольках железы различают секреторные отделы (ацинусы, или альвеолы), внутридольковые вставочные и исчерченные слюнные протоки. В секреторных отделах эпителий представлен клетками двух типов: се- роцитами и миоэпителиоцитами (рис. 13.13). Сероциты имеют форму конуса с отчетливо выраженными апикальной и базальной частями. Округлое ядро занимает почти срединное положение. В базальной части располагаются хорошо развитые гранулярная эндоплазматическая сеть и комплекс Гольджи. Это указывает на высокий уровень синтеза белка в клетках. В апикальной части се-роцитов концентрируются специфические секреторные гранулы, содержащие амилазу и некоторые другие ферменты. Между сероцитами выявляются межклеточные секреторные канальцы (см. рис. 13.12). Миоэпителиоциты охватывают ацинусы наподобие корзинок и лежат между основаниями сероцитов и базальной мембраной. В их цитоплазме имеются сократительные филамен-ты, сокращение которых способствует выделению секрета.
Вставочные протоки начинаются непосредственно от секреторных отделов. Они имеют небольшой диаметр, сильно разветвлены, выстланы низким кубическим эпителием, среди клеток которого есть малодифференцированные камбиальные клетки. Здесь, а также в исчерченных слюнных протоках встречаются миоэпителиоциты. Исчерченные слюнные протоки имеют больший диаметр, широкий просвет и выстланы цилиндрическим эпителием. Цитоплазма эпителиоцитов характеризуется отчетливой оксифилией. В базальной части клеток выявляется исчерченность, обусловленная закономерным расположением митохондрий и глубокими складками плазмолеммы. Эти клетки осуществляют транспорт воды и ионов. В выводных протоках поодиночке или группами встречаются эндокринные клетки - серотониноциты.

Рис. 13.13. Строение околоушной слюнной железы: а - схема: 1 - концевой секреторный отдел; 2 - вставочный проток; 3 - исчерченный проток; 4 - междольковый выводной проток; 5 - сероциты; 6 - миоэпителиоциты; б: 1 - секреторные отделы; 2 - исчерченный проток; 3 - просвет междолькового протока; 4 - междольковая соединительная ткань; микрофотография, окраска гематоксилином и эозином (увеличение малое)
Междольковые выводные протоки выстланы двухслойным эпителием, который становится многослойным кубическим в главном протоке околоушной железы. Устье протока выстлано многослойным плоским эпителием и расположено на поверхности слизистой оболочки щеки.
Поднижнечелюстные железы. По составу секрета эти железы относятся к смешанным. Их концевые секреторные отделы бывают двух видов: белковые и белково-слизистые. Преобладают белковые ацинусы, устроенные так же, как и в околоушной железе. Смешанные секреторные отделы включают сероциты, составляющие так называемые серозные полулуния, и мукоциты (рис. 13.14). Имеются также и миоэпителиоциты. Мукоциты выглядят более светлыми по сравнению с сероцитами. Ядро в этих клетках лежит у основания, оно уплощено, а слизистый секрет занимает большую часть цитоплазмы. Внутридольковые вставочные протоки короткие, но исчерченные слюнные протоки длинные и хорошо развиты. Клетки последних синтезируют инсулиноподобный фактор и другие биологически активные вещества. Эпителий междольковых протоков по мере увеличения калибра постепенно становится многослойным.
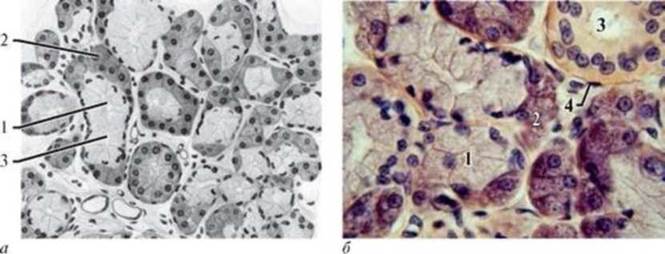
Рис. 13.14. Строение пєднижнєчєлюєтнєй железы: а - схема: 1 - смешанный концевой отдел; 2 - серозное полулуние; 3 - мукоциты; б: 1 - секреторные отделы; 2 - серозное полулуние; 3 - просвет исчерченного протока; 4 - миоэпителиоцит; микрофотография, окраска гематоксилином и эозином (увеличение среднее)
Подъязычные железы. Это альвеолярно-трубчатые железы, вырабатывающие слизисто-белковый секрет с преобладанием слизистого секрета. В них имеются секреторные отделы трех типов: белковые, слизистые и смешанные. Основную массу составляют смешанные концевые отделы, образованные му- коцитами и серомукозными полулуниями. Клетки последнего содержат оба вида секрета. Вставочные и исчерченные протоки в подъязычной железе развиты слабо.
13.1.3. Твердое и мягкое нёбо. Миндалины
Твердое нёбо состоит из костной основы и плотно сращенной с ней слизистой оболочки. Подслизистая основа здесь отсутствует. Слизистая оболочка включает многослойный плоский неороговевающий эпителий и собственную соединительнотканную пластинку, коллагеновые волокна которой вплетаются в надкостницу.
Мягкое нёбо и язычок имеют сухожильно-мышечную основу, покрытую слизистой оболочкой. В них хорошо выражена подслизистая основа. На передней (ротовой) поверхности - эпителий многослойный плоский неороговевающий (рис. 13.15).
На задней (носовой) поверхности мягкого нёба и язычка - эпителий многорядный мерцательный (рис. 13.16).
Основу язычка составляет поперечнополосатая мышечная ткань, мышечные волокна которой ветвятся и образуют анастомозы. Мягкое нёбо и язычок участвуют в акте глотания, закрывая собой носоглотку и препятствуя тем самым попаданию пищи в полость носа.
Миндалины. На границе полости рта и глотки в составе слизистой оболочки расположены скопления лимфоидной ткани в виде миндалин (нёбных, глоточной, язычной, трубных, гортанных). Вместе они составляют лимфоэпителиальное глоточное кольцо Пирогова. Миндалины выполняют защитную функцию, обезвреживая микробы, попадающие с воздухом и пищей. Миндалины относятся к кроветворной и иммунной системе и обеспечивают развитие лимфоцитов (рис. 13.17).
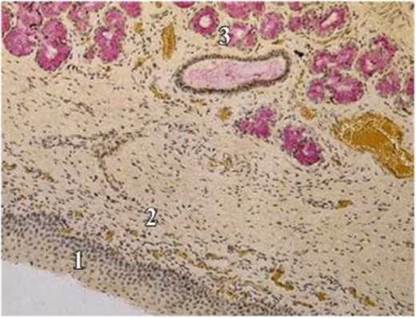
Рис. 13.15. Строение передней поверхности язычка: 1 - многослойный плоский неороговевающий эпителий; 2 - собственная пластинка слизистой оболочки с эластическими волокнами; 3 - подслизистая основа со слизистыми железами; микрофотография, окраска гематоксилином и пикрофуксином (увеличение малое)
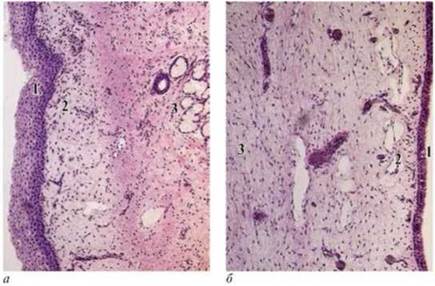
Рис. 13.16. Строение передней (а) и задней (б) поверхности мягкого нёба: а: 1 - многослойный плоский неороговевающий эпителий; 2 - собственная пластинка слизистой оболочки; 3 - подслизистая основа; б: 1 - многорядный мерцательный эпителий; 2 - собственная пластинка слизистой оболочки; 3 - подслизистая основа; микрофотографии, окраска гематоксилином и эозином (увеличение малое)
Миндалины закладываются гетерохронно в период с 3-го по 5-й месяц эмбриогенеза. Механизм их развития сводится к взаимодействию эпителия, ретикулярной ткани и лимфоцитов. В местах закладки нёбных и глоточной миндалин эпителий вначале многорядный мерцательный. Позднее все миндалины оказываются покрытыми многослойным плоским неороговевающим эпителием. В подлежащую ретикулярную ткань вселяются лимфоциты (преимущественно Т-лимфоциты). Они образуют многочисленные лимфатические узелки, отделенные друг от друга тонкими прослойками соединительной ткани. Поверхность миндалины имеет углубления, называемые криптами (см. рис. 13.17). Разветвляясь в глубине миндалины, они образуют вторичные крипты. Эпителий в области крипт заселяется лимфоцитами и гранулоцитами.

Рис. 13.17. Строение нёбной миндалины: а - схема; б - микрофотография, окраска гематоксилином и эозином (увеличение малое): 1 - многослойный плоский неороговевающий эпителий; 2 - инфильтрация эпителия лимфоцитами; 3 - крипта; 4 - лимфатический узелок
Инфильтрируя эпителий, лейкоциты обычно выходят на его поверхность и фагоцитируют попадающие сюда микробы. На дне крипт в миндалинах (например, в язычной) или вокруг миндалин (например, нёбных) открываются протоки небольших слюнных желез, секрет которых способствует очищению крипт от продуктов фагоцитарной деятельности лейкоцитов, пищевых частиц и т.п.
13.1.4. Глотка и пищевод
В глотке перекрещиваются дыхательный и пищеварительный пути. Различают носовую, ротовую и гортанную части глотки. В носовой части слизистая оболочка имеет многорядный мерцательный эпителий. В ротовой и гортанной частях глотки эпителий многослойный плоский неороговевающий. Подслизистая основа содержит концевые отделы слизистых желез. Мышечная оболочка представлена поперечнополосатой мышечной тканью. Внутренний слой ее имеет продольное направление волокон, а наружный - циркулярное. Наружная адвентициальная оболочка глотки состоит из рыхлой соединительной ткани.
Пищевод. Это трубчатый орган, соединяющий гортанную часть глотки и желудок.
Развитие. Источником развития эпителия пищевода является материал прехордальной пластинки (см. главу 5). Остальные ткани стенки пищевода за некоторым исключением (см. ниже) развиваются из мезенхимы. Выстилка пищевода сначала представлена однослойным столбчатым эпителием. Затем этот эпителий становится двухслойным. Сильно разрастаясь, он полностью закрывает просвет пищевода. Последующий апоптоз клеток ведет вновь к образованию просвета, и к 3-му месяцу эмбриогенеза выстилка пищевода представлена многорядным мерцательным эпителием. С 6-го месяца эмбриогенеза эпителий преобразуется в многослойный плоский с островками мерцательных или ороговевших клеток. Постепенно усложняется строение и всех остальных тканей в составе стенки пищевода.
Строение. В стенке пищевода взрослого человека различают слизистую оболочку, подслизистую основу, мышечную и адвентициальную оболочки (рис. 13.18). Слизистая оболочка состоит из многослойного плоского неороговевающего эпителия, собственной соединительнотканной и гладкомышечной пластинок. В эпителии ведущий клеточный дифферон представлен эпителиоцитами, находящимися на последовательных стадиях дифференцировки. Вместе с тем встречаются немногочисленные клетки Лангерганса и эндокринные клетки.

Рис. 13.18. Строение стенки пищевода: а - схема; б - микрофотография, окраска гематоксилином и эозином (увеличение малое): 1 - многослойный плоский неороговевающий эпителий; 2 - собственная пластинка слизистой оболочки; 3 - мышечная пластинка слизистой оболочки; 4 - собственные железы пищевода; 5 - гладкие миоциты слоев мышечной оболочки; 6 - выводной проток собственной железы пищевода; 7 - кардиальная железа
В собственной пластинке слизистой оболочки пищевода в верхней и нижней его трети расположены кардиальные железы пищевода, которые по своему строению схожи с таковыми желудка. Это простые разветвленные трубчатые железы, концевые отделы которых образованы однорядным кубическим эпителием, в составе которого много мукоцитов и разновидностей эндокриноцитов (G-, S- и др.). Из этих желез могут возникать кисты и опухоли. Появление кардиальных желез в пищеводе объясняется меторизисом. Этим термином В.М. Шимкевич (1908) обозначил смещение границ между производными двух соседних эмбриональных зачатков. Полагают, что в области перехода пищевода в желудок материал кишечной энтодермы смещается в сторону пищевода и дает начало железам желудочного типа в пределах слизистой оболочки пищевода.
Мышечная пластинка слизистой оболочки состоит из продольно ориентированных пучков гладких миоцитов, изменение тонуса которых способствует прохождению пищи по пищеводу в желудок. В подслизистой основе располагаются собственные слизистые железы пищевода - производные эпителия пищевода (рис 13.19). Это альвеолярно-трубчатые железы. Их концевые отделы образованы мукоцитами, окруженными миоэпителиоцита-ми. Среди мукоцитов располагаются и эндокриноциты (EC-, ECL- клетки). Мукоциты постоянно выделяют слизь, которая обладает антимикробным действием и защищает эпителий от кислого содержимого желудка. Слизь попадает в расширенный выводной проток, выстланный низким столбчатым эпителием, переходящим в многослойный плоский эпителий в крупном ампулообразном протоке. Последний открывается на поверхности эпителия пищевода.
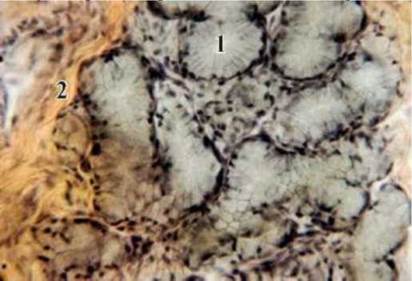
Рис. 13.19. Строение собственных желез пищевода: 1 - мукоциты секреторных отделов сложных альвеолярно-трубчатых желез; 2 - соединительная ткань подслизистой основы; микрофотография, окраска гематоксилином и пикриновой кислотой (увеличение среднее)
Мышечная оболочка пищевода в верхней трети образована поперечнополосатой мышечной тканью миотомного происхождения, в нижней трети - гладкой мезенхимной природы, а в средней трети - и той, и другой мышечными тканями. Эти ткани расположены в виде внутреннего циркулярного и наружного продольного слоев. Утолщения внутреннего циркулярного слоя мышечной оболочки образуют сфинктеры пищевода: верхний - на уровне перстневидного хряща гортани и нижний - в области перехода пищевода в желудок (рис. 13.20).
Мышечная ткань иннервируется преимущественно волокнами блуждающего нерва. Сокращение ее способствует продвижению пищи из пищевода в желудок.
Адвентициальная оболочка пищевода образована рыхлой соединительной тканью, содержащей кровеносные сосуды, нервы и нервные сплетения.
Регенерация пищевода - как физиологическая, так и репаративная - выражена достаточно хорошо. После хирургических операций на пищеводе в связи с опухолевыми процессами, ожогами, ранениями и так далее происходит обычно полное восстановление эпителия и соединительнотканных структур в составе стенки пищевода.
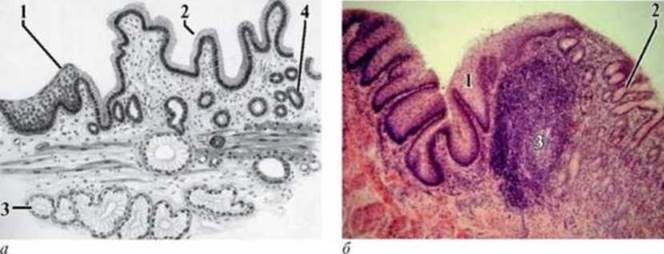
Рис. 13.20. Переход пищевода в желудок: а - схема: 1 - эпителий пищевода; 2 - эпителий желудка; 3 - собственные железы пищевода; 4 - кардиальные железы желудка; б: 1 - эпителий пищевода; 2 - эпителий желудка; 3 - лимфатический узелок на границе двух органов; микрофотография, окраска гематоксилином и эозином (увеличение малое)
Возрастные изменения органов переднего отдела пищеварительного тракта.
У новорожденного и ребенка грудного возраста слизистая оболочка полости рта тонкая, богата сосудами; по краю десен и на губах образует складку, необходимую для плотного обхватывания соска при сосании. Язык относительно большой, играет важную роль в сосании. Поперечнополосатые мышечные волокна в мышечной оболочке языка располагаются (как и у взрослого) в трех взаимно перпендикулярных направлениях, но волокна тонкие и тесно прилежат друг к другу из-за слабо развитых соединительнотканных прослоек. Язык хорошо кровоснабжен. Формирование всех типов сосочков языка не закончено, а характерные для детского возраста листовидные сосочки, напротив, развиты хорошо. Вкусовые почки располагаются на боковых и свободных поверхностях сосочков, окруженных валом, и грибовидных сосочков.
Крупные слюнные железы практически полностью сформированы, хотя из-за недостаточной зрелости иннервации количество выделяемой слюны у новорожденного небольшое. Слюна имеет слизистый характер и в ней присутствуют небольшие количества амилазы и лизоцима. Введение в пищу ребенка прикорма усиливает слюноотделение. С ростом ребенка продолжается образование новых ацинусов слюнных желез, повышается активность амилазы; в околоушной железе секреторные клетки перестраиваются на белковый тип секреции.
Слизистая оболочка пищевода у новорожденного тонкая и богата сосудами. Многослойный плоский эпителий содержит 10 слоев клеток, сохраняются крупные пузыревидные клетки, характерные для эмбрионального периода развития. Граница эпителия с подлежащей соединительной тканью ровная. Рыхлая соединительная ткань бедна волокнами, мышечная пластинка слизистой оболочки относительно хорошо развита только в местах образования складок. Собственные железы в подслизистой основе слабо развиты - практически отсутствуют концевые отделы. Мышечная оболочка сформирована, но окончательного развития не достигла.
В среднем, или гастроэнтеральном, отделе пищеварительного тракта из кишечной энтодермы закладываются желудок, тонкая и толстая кишки, печень и желчный пузырь, поджелудочная железа. Эти органы отвечают за переваривание пищи под действием ферментов желудочного и кишечного соков и всасывание необходимых для организма питательных веществ.
13.2.1. Желудок
Желудок выполняет ряд важных функций, связанных с химической переработкой пищи. Здесь под влиянием желудочного сока начинается активное химическое расщепление пищи. Компонентами желудочного сока являются пепсин, липаза, химозин, а также соляная кислота и слизь. Основной фермент желудочного сока пепсин расщепляет сложные белки пищи на простые белки. Происходит это только в кислой среде, что обеспечивается выработкой соляной кислоты. Липаза участвует в расщеплении жиров. Химозин вырабатывается в желудке только в раннем детском возрасте - он створаживает молоко.
Для нормальной деятельности слизистой оболочки желудка необходима защита ее от повреждающего действия соляной кислоты. Эту функцию выполняет слизь, в состав которой входит нейтрализующее кислоту вещество (ионы гидрокарбоната). Кроме секреторной функции, желудок выполняет и экскреторную функцию, состоящую в выделении через стенку в полость желудка ряда конечных продуктов обмена белков (мочевины, аммиака и др.), а также солей тяжелых металлов. В желудке происходит всасывание некоторых веществ (воды, спирта, солей, сахара и др.). Всасывательная функция слизистой оболочки желудка, однако, ограничена. Следует отметить еще защитную (барьерную) функцию эпителия желудка, препятствующую проникновению микробов в кровь, предупреждающую самопереваривание; моторную, осуществляемую за счет сокращения мышечной оболочки, что важно для перемешивания пищи и продвижения ее в двенадцатиперстную кишку. Эндокринная функция желудка имеет значение для регуляции пищеварения.
Развитие. Желудок закладывается на 4-й неделе эмбриогенеза, но основные процессы гистогенеза происходят в течение 2-го месяца. В это время энто-дермальный эпителий становится однослойным столбчатым. На протяжении 6-10-й недель формируются производные эпителия - железы. Однако и к моменту рождения процесс дифференцировки желудочных желез не завершается. Мышечная оболочка развивается из мезенхимы. Висцеральный листок спланхнотома дает мезотелий. Окончательного развития желудок со всеми его оболочками достигает к 10-12 годам.
Строение. В желудке взрослого человека различают следующие отделы: кардиальный, фундальный, тело желудка и пилорический отдел. Стенка желудка состоит из слизистой оболочки, подслизистой основы, мышечной и серозной оболочек. Слизистая оболочка желудка толщиной около 1 мм имеет неровную поверхность (рис. 13.21). Сложный рельеф ее обусловлен наличием складок, полей и ямочек. По малой кривизне желудка складки имеют продольное направление (желудочная дорожка). Желудочные поля - это участки слизистой оболочки с отграниченными посредством бороздок группами желез.
Желудочные ямочки представляют собой многочисленные углубления эпителия, в которые открываются по 2-3 железы. Общее число ямочек достигает почти 3 млн. Внутренняя поверхность желудка покрыта однослойным столбчатым эпителием кишечного типа. Все клетки эпителия - поверхностные эпителиоциты, постоянно выделяют слизеподобный секрет. Слой слизи защищает слизистую оболочку от механических воздействий пищи и препятствует самоперевариванию тканей желудочным соком. При действии раздpaжaющиx веществ (спирта, кислот и др.) количество выделяемой слизи значительно увеличивается. Таким образом, поверхностный эпителий желудка представляет собой огромное железистое поле. Активная поверхность слизистой оболочки желудка во много раз увеличивается благодаря наличию многочисленных и разнообразных по структуре желудочных желез - собственных, пилорических и кардиальных.
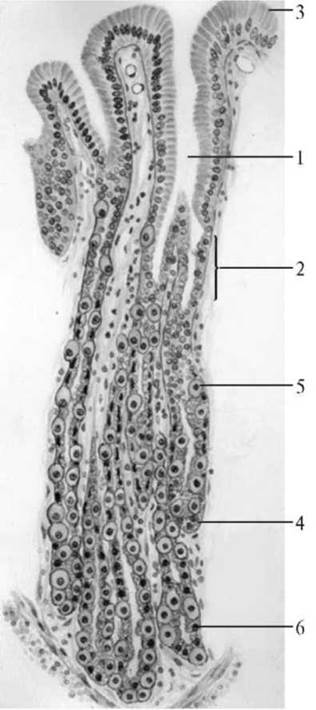
Рис. 13.21. Схема строения слизистой оболочки желудка: 1 - желудочная ямочка; 2 - шейка железы; 3 - поверхностные мукоциты; 4 - мукоциты железы; 5 - париетальные экзокриноциты; 6 - главные экзокриноциты
Железы желудка. В желудочных железах различают шейку и главную часть, состоящую из тела и дна. Главная часть является секреторным отделом, а шейка - выводным протоком железы. В кардиальном, фундальном и пилорическом отделах желудка железы имеют неодинаковое строение. Кардиальные железы - простые трубчатые железы с сильно разветвленными концевыми отделами. Они располагаются в собственной пластинке слизистой оболочки кардиального отдела желудка. Эпителий кардиальных желез состоит из слизистых клеток (мукоцитов), а также единичных париетальных (обкладочных) экзокриноцитов и эндокриноцитов.
Собственные железы желудка (фундальные) - простые трубчатые неразветвленные железы, расположенные в области дна и тела желудка (рис. 13.22).
Это наиболее многочисленные железы желудка. Общее их число у человека составляет около 35 млн. Шейка этих желез содержит камбиальные клетки и шеечные мукоциты. В эпителиальной стенке тела и дна фундальных желез различают главные и париетальные (обкладочные) экзокриноциты, мукоциты, эндокриноциты и малодифференцированные эпителиоциты.
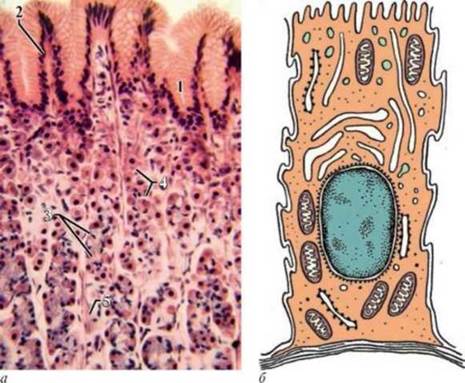
Рис. 13.22. Строение фундальной железы желудка: а: 1 - желудочная ямочка; 2 - поверхностные мукоциты; 3 - мукоциты железы; 4 - париетальные экзокриноциты; 5 - главные экзокриноциты; микрофотография, окраска гематоксилином и эозином (увеличение среднее); б - схема строения поверхностного мукоцита эпителия желудка
Пилорические железы являются трубчатыми железами с короткими и разветвленными концевыми отделами (рис. 13.23).
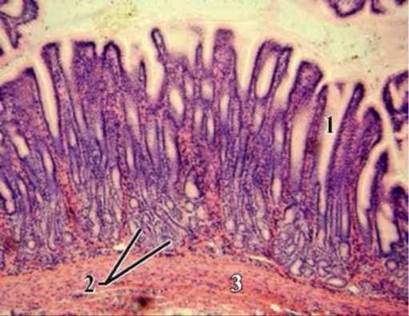
Рис. 13.23. Строение слизистой оболочки пилорической части желудка: 1 - глубокие желудочные ямочки; 2 - поперечные сечения разветвленных пилорических желез в собственной пластинке слизистой оболочки; 3 - мышечная пластинка слизистой оболочки; микрофотография, окраска гематоксилином и эозином (увеличение малое)
Они располагаются в области привратника. Между этими железами хорошо выражены прослойки соединительной ткани слизистой оболочки. Эпителий пилорических желез образован преимущественно мукоцитами и эндокриноцитами. Для пилорических желез характерно то, что они открываются в глубокие желудочные ямочки.
Эпителий желудка и его желез представляет собой специализированную ткань, состоящую из нескольких клеточных дифферонов, источником развития которых служат стволовые клетки, расположенные в области шеек желез. Эти клетки интенсивно метятся при введении радиоактивного изотопа тимидина, часто делятся митозом, дивергентно дифференцируются как в эпителиоциты поверхностного эпителия слизистой оболочки желудка, так и в разные виды эпителиоцитов желудочных желез. Соответственно этому дифференцировка и смещение вновь возникающих клеток идут в двух направлениях: в сторону поверхностного эпителия и в глубину желез. Обновление клеток в эпителии желудка происходит за 1 -3 сут. Значительно медленнее обновляются специализированные клетки эпителия желудочных желез.
Главные экзокриноциты располагаются в области тела и дна железы, вырабатывают профермент пепсиноген, который в кислой среде превращается в активную форму - пепсин, главный компонент желудочного сока (рис. 13.24).

Рис. 13.24. Строение главного экзокриноцита: а: 1 - развитая эндоплазматическая сеть; 2 - секреторные гранулы зимогена; 3 - межклеточное пространство; электронная микрофотография (увеличение 12 000); б - схема строения клетки
Экзокриноциты имеют столбчатую форму, хорошо развитую гранулярную эндоплазматическую сеть, базофильную цитоплазму с секреторными гранулами зимогена.
Париетальные экзокриноциты - крупные, округлой или неправильно угловатой формы клетки, расположенные в составе стенки железы кнаружи от главных экзокриноцитов и мукоцитов (рис. 13.25). Цитоплазма клеток резко оксифильна (см. рис. 13.22). В ней содержатся многочисленные митохондрии. Ядро лежит в центральной части клетки. В цитоплазме есть система внутриклеточных секреторных канальцев, переходящих в межклеточные канальцы. В просвет внутриклеточных канальцев выступают многочисленные микроворсинки. По секреторным канальцам из клетки на апикальную ее поверхность выводятся ионы водорода и хлора, образующие соляную кислоту. Париетальные клетки секретируют также внутренний фактор Кастла, необходимый для всасывания витамина В12 в тонкой кишке.

Рис. 13.25. Строение париетального экзокриноцита: а: 1 - митохондрии; 2 - внутриклеточный секреторный каналец; 3 - ядро; электронная микрофотография (увеличение 12 000); б - схема строения клетки
Мукоциты - слизистые клетки столбчатой формы со светлой цитоплазмой и уплотненным ядром, смещенным в базальную часть (рис. 13.26).
При электронной микроскопии в апикальной части слизистых клеток выявляется большое количество секреторных гранул. Располагаются мукоциты в главной части желез, преимущественно в теле собственных желез. Функция клеток - выработка слизи.
Эндокриноциты желудка представлены несколькими клеточными дифферонами, для названия которых приняты буквенные сокращенные обозначения (ЕС, ЕСL, G, Р, D, А и др.). Для всех этих клеток характерна более светлая цитоплазма, чем для других эпителиальных клеток. Отличительным признаком эндокринных клеток является наличие в цитоплазме секреторных гранул (рис. 13.27). Поскольку гранулы способны восстанавливать нитрат серебра, эти клетки называют аргирофильными. Они интенсивно окрашиваются также бихроматом калия, с чем связано другое название эндокриноцитов - энтерохромаффинные. На основании строения секреторных гранул, а также с учетом их биохимических и функциональных свойств эндокриноциты классифицируются на несколько видов.

Рис. 13.26. Строение мукоцита железы желудка: а: 1 - ядро; 2 - секреторные гранулы; электронная микрофотография (увеличение 12 000); б - схема строения клетки

Рис. 13.27. Секреторные гранулы (стрелки) в эндокриноците железы желудка: электронная микрофотография (увеличение 20 000)
ЕС-клетки самые многочисленные, располагаются в теле и дне железы, между главными экзокриноцитами, и секретируют серотонин и мелатонин. Серотонин стимулирует секреторную деятельность главных экзокриноцитов и мукоцитов. Мелатонин участвует в регуляции биологических ритмов функциональной активности секреторных клеток в зависимости от световых циклов.
ECL-клетки вырабатывают гистамин, который действует на париетальные экзокриноциты, регулируя продукцию соляной кислоты.
G-клетки называют гастринпродуцирующими. В большом количестве они встречаются в пилорических железах желудка. Г астрин стимулирует деятельность главных и париетальных экзокриноцитов, что сопровождается усиленной выработкой пепсиногена и ионов водорода и хлора. У людей с повышенной кислотностью желудочного сока отмечается увеличение количества G-клеток и их гиперфункция. Имеются данные о том, что G-клетки вырабатывают энкефалин - морфиноподобное вещество, впервые обнаруженное в мозге и участвующее в регуляции чувства боли.
Р-клетки секретируют бомбезин, который усиливает сокращения гладкой мышечной ткани желчного пузыря, стимулирует выделение ионов водорода и хлора париетальными экзокриноцитами.
D-клетки вырабатывают соматостатин - ингибитор гормона роста. Он угнетает синтез белков.
ВИП-клетки продуцируют вазоинтестинальный пептид, расширяющий кровеносные сосуды и снижающий артериальное давление. Этот пептид стимулирует также выделение гормонов клетками островков поджелудочной железы.
А-клетки синтезируют энтероглюкагон, расщепляющий гликоген до глюкозы подобно глюкагону А- клеток островков поджелудочной железы.
В большинстве эндокриноцитов секреторные гранулы находятся в базальной части клетки. Содержимое гранул выделяется в соединительную ткань собственной пластинки слизистой оболочки и далее попадает в кровеносные капилляры.
Мышечная пластинка слизистой оболочки образована тремя слоями гладких миоцитов.
Подслизистая основа стенки желудка представлена рыхлой соединительной тканью с сосудистыми и нервными сплетениями.
Мышечная оболочка желудка состоит из трех слоев гладкой мышечной ткани: наружного продольного, среднего циркулярного и внутреннего с косым направлением мышечных пучков. Средний слой в области привратника утолщен и образует пилорический сфинктер. Серозная оболочка желудка образована поверхностно лежащим мезотелием, а ее основу составляет рыхлая соединительная ткань.
В стенке желудка расположены подслизистое, мышечно-кишечное и подсерозное нервные сплетения. В ганглиях межмышечного сплетения преобладают вегетативные нейроны Догеля I типа, в пилорической области желудка больше нейронов Догеля II типа. К сплетениям идут проводники от блуждающего нерва и из пограничного симпатического ствола. Возбуждение блуждающего нерва стимулирует секрецию желудочного сока, тогда как возбуждение симпатических нервов, наоборот, угнетает желудочную секрецию.
13.2.2. Тонкая кишка
В тонкой кишке различают три переходящих друг в друга отдела: двенадцатиперстную, тощую и подвздошную кишки. В тонкой кишке происходят дальнейшее переваривание пищи, предварительно обработанной в полости рта и желудке, и всасывание продуктов расщепления белков, жиров и углеводов. За счет сокращений мышечной оболочки тонкая кишка выполняет механическую функцию, продвигая химус в каудальном направлении. В переваривании пищи участвуют ферменты поджелудочной железы и экзокриноциты эпителия тонкой кишки. Белки расщепляются под действием ферментов энтерокиназы, пептидазы, трипсина и др. Жиры переваривает липаза, а углеводы - амилаза, мальтоза, сахароза, лактоза, фосфатаза. Кроме химической обработки пищи и всасывания продуктов расщепления тонкой кишке свойственна эндокринная функция. Эндокриноциты кишечного эпителия вырабатывают большую группу биологически активных веществ - серотонин, мотилин, гистамин, секретин, энтероглюкагон, холецистокинин, гастрин и ингибитор гастрина. По мнению А.М. Уголева, двенадцатиперстная кишка является главным регулирующим пищеварение органом пищеварительной системы. Однако гормоны и биологически активные амины, синтезируемые в кишечнике, имеют не только местное значение для пищеварительной функции организма, многие из них играют важную общеметаболическую роль. Клетки, синтезирующие эти гормоны, относятся к дисперсной эндокринной системе организма (см. главу 18).
Развитие. Эпителий тонкой кишки начинает развиваться из кишечной энтодермы на 5-й неделе эмбриогенеза. К 8-й неделе он из однослойного кубического превращается в столбчатый эпителий. В течение 3-го месяца формируются ворсинки и крипты. Дифференцировка эпителиоцитов характеризуется последовательным появлением столбчатых (каемчатых и бескаемчатых) эпителиоцитов, бокаловидных экзокриноцитов и эндокринных клеток. Среди последних преобладают ЕС-клетки. Параллельно с развитием эпителия гистогенетические процессы происходят в остальных структурах, составляющих стенку тонкой кишки, источниками развития которых являются мезенхима и висцеральный листок спланхнотома.
Строение. Стенка тонкой кишки включает слизистую оболочку, подслизистую основу, мышечную и серозную оболочки. Слизистая оболочка состоит из эпителия, соединительнотканной и гладкомышечной пластинок. Рельеф слизистой оболочки неровный благодаря наличию складок, ворсинок и крипт (рис. 13.28).
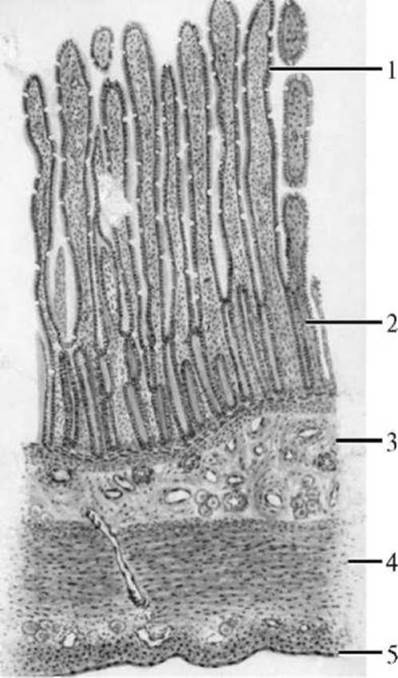
Рис. 13.28. Схема строения стенки тонкой кишки: 1 - ворсинка; 2 - крипта; 3 - подслизистая основа; 4 - мышечная оболочка; 5 - серозная оболочка
Кишечные ворсинки - это выросты слизистой оболочки в просвет тонкой кишки. Кишечные крипты - трубчатые углубления эпителия в собственную пластинку слизистой оболочки. Количество кишечных ворсинок в тонкой кишке человека исчисляется несколькими миллионами.
Соотношение числа ворсинок и крипт приблизительно равно 1:4. Высота ворсинок около 1 мм. В двенадцатиперстной кишке они широкие и короткие. В тощей и подвздошной кишках ворсинки более высокие, но они несколько тоньше. В тонкой кишке общее число ворсинок превышает 1,4 млн.

Рис. 13.29. Строение ворсинки тонкой кишки: а - схема строения: 1 - столбчатые эпителиоциты (каемчатые); 2 - бокаловидный экзокриноцит; 3 - рыхлая соединительная ткань; 4 - лимфатический капилляр; 5 - гладкие миоциты; б - микрофотография, окраска гематоксилином и эозином (увеличение среднее)
Поверхность ворсинок покрывает однослойный столбчатый каемчатый эпителий, а основу составляет рыхлая соединительная ткань, содержащая кровеносные капилляры и один лимфатический капилляр (рис. 13.29). В строме ворсинок присутствуют гладкие миоциты, которые обеспечивают до 4-6 сокращений ворсинки в минуту, а также плазматические и тучные клетки, В-и Т-лимфоциты, макрофаги. Укорочение ворсинок, сжатие просвета их капилляров и ритмическое проталкивание крови в капиллярах стромы ворсинок имеют существенное значение в процессах всасывания и транспорта питательных веществ. В процессах всасывания активная роль принадлежит, прежде всего, эпителию, покрывающему ворсинки, который составляет единую систему с эпителием крипты. Всасывание питательных веществ происходит лишь после ферментативного расщепления белков до аминокислот, жиров - до моноглицеридов, жирных кислот, глицерина и углеводов - до глюкозы. Аминокислоты и глюкоза, пройдя через эпителиоциты ворсинки и подвергаясь при этом дальнейшим превращениям, поступают в кровеносные капилляры ворсинок. Всасывание жиров сопровождается также сложными превращениями в цитоплазме эпителиоцитов с последующим поступлением липидов в лимфатические капилляры.
В кишечных криптах находятся камбиальные, а также стволовые клетки, за счет которых происходит обновление клеточного состава эпителия крипт и ворсинок. Фигуры митоза встречаются преимущественно в средней части крипт. В результате дивергентной дифференцировки стволовой клетки образуются следующие диффероны: столбчатые эпителиоциты (каемчатые, всасывательные), бокаловидные экзокриноциты (слизистые), клетки Панета и эндокриноциты. Миграция этих клеток от места пролиферации идет в двух направлениях. Первые два вида включаются в состав эпителия ворсинки. Клетки Панета и эндокриноциты мигрируют на дно крипты.
Столбчатые эпителиоциты (энтероциты) - наиболее многочисленные клетки кишечного эпителия, выполняющие основную всасывательную функцию кишечника. Эти клетки составляют около 90% общего числа клеток кишечного эпителия. Характерной чертой их дифференцировки является образование щеточной каемки из плотно расположенных микроворсинок на апикальной поверхности клеток (рис. 13.30).

Рис. 13.30. Строение каемчатого энтероцита тонкой кишки: 1 - гликокаликс; 2 - микроворсинки на апикальной поверхности энтероцита; 3 - митохондрии в цитоплазме энтероцита; электронная микрофотография (увеличение 35 000) (по К.А. Зуфарову)
Длина микроворсинок около 1 мкм, диаметр примерно 0,1 мкм. Общее число микроворсинок на поверхности одной клетки колеблется в широких пределах - от 500 до 3000. Микроворсинки покрыты снаружи гликокаликсом, который адсорбирует ферменты, участвующие в пристеночном (контактном) пищеварении. За счет микроворсинок активная поверхность всасывания кишки возрастает в 30-40 раз. Между эн-тероцитами в их апикальной части хорошо развиты контакты типа адгезивных поясков и плотных контактов. Базальные части клеток контактируют с боковыми поверхностями соседних клеток посредством интер-дигитаций и десмосом, а основание клеток прикрепляется к базальной мембране полу-десмосомами. Благодаря наличию этой системы межклеточных контактов кишечный эпителий выполняет барьерную функцию, предохраняя организм от проникновения микробов и чужеродных веществ.
Бокаловидные экзокриноциты - это одноклеточные слизистые железы, расположенные среди столбчатых эпителиоцитов (см. рис. 13.29). Они вырабатывают углеводно-протеиновые комплексы - муцины, выполняющие защитную функцию и способствующие продвижению пищи в кишечнике. Количество клеток возрастает по направлению к каудальному отделу кишечника. Форма клеток меняется в различные фазы секреторного цикла от столбчатой до бокаловидной. В цитоплазме клеток развиты комплекс Гольджи и гранулярная эндоплазматическая сеть - центры синтеза гликоза-миногликанов и белков.
Клетки Панета, или экзокриноциты с ацидофильными гранулами, постоянно находятся в криптах (по 68 клеток) тощей и подвздошной кишок (рис. 13.31).
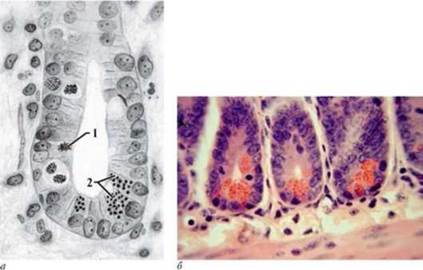
Рис. 13.31. Строение крипты тонкой кишки: а - схема: 1 - митозы камбиальных эпителиоцитов; 2 - экзокриноциты с ацидофильными гранулами (клетки Панета); б - микрофотография экзокриноцитов с ацидофильными гранулами, окраска гематоксилином и эозином (увеличение большое)
Общее число их составляет примерно 200 млн. В апикальной части этих клеток определяются ацидофильные секреторные гранулы. В цитоплазме выявляются также цинк, хорошо развитая гранулярная эндоплазматическая сеть. Клетки выделяют секрет, богатый ферментом пептидазой, лизоцим и др. Полагают, что секрет клеток нейтрализует соляную кислоту содержимого кишечника, участвует в расщеплении дипептидов до аминокислот, обладает антимикробным свойством.
Эндокриноциты (энтерохромаффиноциты, аргентаффинные клетки, клетки Кульчицкого) - базальнозернистые клетки, расположенные на дне крипт. Они хорошо импрегнируются солями серебра, имеют сродство к солям хрома. Среди эндокринных клеток различают несколько видов, секретирующих различные гормоны: ЕС-клетки вырабатывают мелатонин, серотонин и вещество Р; S-клетки - секретин; ECL-клетки - энтероглюкагон; I-клетки - холецистокинин; D-клетки - вырабатывают соматостатин, ВИП - вазоактивные интестинальные пептиды. Эндокриноциты составляют около 0,5% общего числа клеток кишечного эпителия.
Обновляются эти клетки значительно медленнее, чем эпителиоциты. Методами гисторадиоавтографин показано, что в целом обновление клеточного состава кишечного эпителия происходит за 4-5 сут в двенадцатиперстной кишке и несколько медленнее (за 5-6 сут) в подвздошной кишке.
Собственная пластинка слизистой оболочки тонкой кишки состоит из рыхлой соединительной ткани, в которой определяются макрофаги, плазматические клетки и лимфоциты. Имеются также как одиночные (солитарные) лимфатические узелки, так и более крупные скопления лимфоидной ткани - агрегаты, или групповые лимфатические узелки (пейеровы бляшки). Эпителий, покрывающий последние, имеет ряд особенностей строения (рис. 13.32).
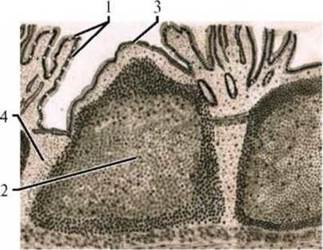
Рис. 13.32. Схема строения слизистой оболочки подвздошной кишки: 1 - столбчатые эпителиоциты ворсинки; 2 - лимфатический узелок; 3 - выпячивание слизистой оболочки в просвет кишки (купол); 4 - собственная пластинка слизистой оболочки

Рис. 13.33. Строение двенадцатиперстной кишки: 1 - кишечные крипты; 2 - мышечная пластинка слизистой оболочки; 3 - подслизистые дуоденальные (бруннеровы) железы; микрофотография, окраска гематоксилином и эозином (увеличение малое)
В его составе находятся антигенпредстав-ляющие эпителиоциты с микроскладками на апикальной поверхности (М-клетки). Они формируют эндоцитозные пузырьки с антигеном и путем экзоцитоза переводят его в межклеточное пространство, где располагаются лимфоциты. Последующее развитие и образование плазматических клеток, выработка ими иммуноглобулинов нейтрализует антигены и микроорганизмы кишечного содержимого. Мышечная пластинка слизистой оболочки представлена гладкой мышечной тканью.
В подслизистой основе двенадцатиперстной кишки находятся дуоденальные (бруннеровы) железы (рис. 13.33). Это сложные разветвленные трубчатые слизистые железы. Основной вид клеток в эпителии этих желез - слизистые гландулоциты. Выводные протоки этих желез выстланы микрокаемчатыми клетками. Кроме того, в эпителии дуоденальных желез встречаются клетки Панета, бокаловидные экзокриноциты и эндокриноциты. Секрет этих желез участвует в расщеплении углеводов и нейтрализации соляной кислоты, поступающей из желудка, механической защите эпителия.
Мышечная оболочка тонкой кишки состоит из внутреннего (циркулярного) и наружного (продольного) слоев гладкой мышечной ткани. В двенадцатиперстной кишке мышечная оболочка тонкая и ввиду вертикального расположения кишки практически не участвует в перистальтике и продвижении химуса. Снаружи тонкая кишка покрыта серозной оболочкой. Кровоснабжение стенки тонкой кишки представлено межмышечным, подслизистым и слизистым сплетениями артерий. Вены образуют слизистое и подслизистое сплетения. Лимфатические капилляры ворсинок участвуют в переносе веществ при их всасывании из просвета кишки. При всасывании мономеры белков, жиров и углеводов проходят через клетки и базальную мембрану эпителия, стенку сосуда и таким образом поступают в кровь и лимфу.
Между слоями мышечной оболочки располагаются интрамуральные ганглии. Чувствительная иннервация осуществляется нейронами чувствительных ганглиев и нейронами Догеля II типа.
13.2.3. Толстая кишка. Червеобразный отросток. Прямая кишка
Толстая кишка
Толстая кишка состоит из слепой кишки, червеобразного отростка, ободочной кишки, сигмовидной и прямой, которая заканчивается анальным отверстием. В толстой кишке происходят интенсивное всасывание воды, переваривание клетчатки с участием бактериальной микрофлоры, выработка витамина К и комплекса витаминов В, выделение ряда веществ, например, солей тяжелых металлов. В толстой кишке всасывается около 7 л жидкости в сутки (около 1 л слюны, 2 л желудочного сока, 0,5 л поджелудочного сока, 1 л желчи, 1 л кишечного сока и 1-2 л выпиваемой воды).
Развитие. Эпителий толстой кишки имеет энтодермальное происхождение, кроме той части, которая входит в состав выстилки промежуточной и кожной зон прямой кишки. Здесь эпителий имеет эктодермальный генез. Остальные ткани имеют мезенхимное (соединительные ткани и гладкая мышечная ткань) и целомическое (мезотелий) происхождение.
Строение. Стенка кишки образована слизистой оболочкой, подслизистой основой, мышечной и серозной оболочками (рис. 13.34). В толстой кишке ворсинки отсутствуют, но кишечные крипты сильно развиты. Слизистая оболочка имеет многочисленные складки.

Рис. 13.34. Схема строения стенки толстой кишки: 1 - крипта; 2 - подслизистая основа; 3 - мышечная оболочка; 4 - серозная оболочка
Эпителий слизистой оболочки толстой кишки - однослойный столбчатый. Он состоит из поверхностных эпителиоцитов (каемчатых и бескаемчатых колоноцитов), бокаловидных экзокриноцитов, отдельных эндокриноцитов (преимущественно EC-и ECL-клеток) и малодифференцированных (камбиальных) клеток. Наличие большого числа бокаловидных экзокриноцитов находится в корреляции с необходимостью выделения слизистого секрета, который облегчает проведение пищевых масс по кишечнику. В собственной пластинке слизистой оболочки хорошо развит защитный механизм от микробов. Здесь имеются многочисленные лимфоидные скопления. Мышечная пластинка представлена циркулярным (внутренний) и продольным (наружный) слоями гладких миоцитов.
В рыхлой соединительной ткани подслизистой основы располагаются нервные и сосудистые элементы, скопления адипоцитов.
Мышечная оболочка толстой кишки отличается от таковой у тонкой кишки: сплошной внутренний циркулярный слой снаружи покрыт продольным слоем, в котором пучки гладких миоцитов собраны в три ленты. Участки кишки между продольными лентами формируют вздутия, выбухающие наружу - гаустры, необходимые для медленного перемещения содержимого кишки, более полного всасывания из него воды и формирования каловых масс. В серозной оболочке появляются выпячивания, которые содержат жировую ткань.
Физиологическая и репаративная регенерация тканей стенки толстой кишки происходит за счет собственных клеточных источников. Так, клеточный состав эпителия обновляется полностью за 4-5 сут.
При ранениях, химических ожогах и особенно при лучевом повреждении в кишечнике резко замедляются или прекращаются процессы пролиферации камбиальных клеток в кишечных криптах и железах, нарушаются дифференцировка эпителиоцитов и клеток желез, их интеграция, резко замедляется миграция клеточных элементов из крипт на поверхность ворсинок, отмечаются уплощение, гибель и слущивание покровного секретирующего эпителия. При этом обнажается соединительнотканная строма складок, ворсинок, нарушается защитная функция эпителиальной выстилки. Репаративные процессы начинают развиваться в криптах и железах, где из сохранившихся камбиальных клеток за счет их пролиферации и последующей дифференцировки постепенно восстанавливается эпителиальный пласт.
Червеобразный отросток
Червеобразный отросток (аппендикс) представляет собой пальцевидный орган, примыкающий в слепой кишке, который закладывается на 6-й неделе эмбриогенеза в месте соединения толстой и тонкой кишок (рис. 13.35).

Рис. 13.35. Строение стенки червеобразного отростка: а - схема; б - микрофотография, окраска гематоксилином и эозином (увеличение малое): 1 - однослойный столбчатый эпителий; 2 - крипта; 3 - собственная пластинка слизистой оболочки; 4 - подслизистая основа; 5 - мышечная оболочка; 6 - серозная оболочка; 7 - лимфатический узелок в подслизистой основе; 8 - лимфатические узелки в собственной пластинке слизистой оболочки
У человека аппендикс развивается как самостоятельный орган. Слизистая оболочка его включает однослойный столбчатый эпителий и хорошо развитые крипты. В составе эпителия находятся столбчатые эпителиоциты с щеточной каемкой и без каемки, бокаловидные экзокриноциты, клетки Панета и эндокриноциты (EC-, D- и другие виды). Собственная пластинка слизистой оболочки образована рыхлой соединительной тканью. В ней, а также в подслизистой основе располагаются крупные скопления лимфоидной ткани. Иногда лимфатические узелки, сливаясь друг с другом, полностью окружают просвет отростка и даже перекрывают его. При попадании в просвет и ткани червеобразного отростка микробов может произойти воспаление, что потребует хирургического удаления его (аппендэктомии). Лимфоидная ткань аппендикса участвует в защитной функции организма вместе с другими лимфоидными образованиями в составе стенки кишечной трубки (см. выше). Кроме того, предполагается, что аппендикс человека выполняет эндокринную функцию, то есть является эндокринной железой. С возрастом происходит частичная или полная облитерация просвета отростка. Эндокриноциты в составе соединительной ткани аппендикса могут быть источником развития опухоли червеобразного отростка.
Прямая кишка
Каудальная часть прямой кишки составляет задний отдел пищеварительной трубки. В анальной ее части различают столбчатую, промежуточную и кожную зоны. Слизистая оболочка в этих зонах состоит из эпителия, собственной и мышечной пластинок. Эпителий в столбчатой зоне - многослойный кубический, в промежуточной - многослойный плоский неороговевающий и в кожной зоне - многослойный плоский ороговевающий. В собственной пластинке расположены одиночные лимфатические узелки. В связи со слабым развитием мышечной пластинки здесь нет четкого разграничения собственной пластинки слизистой оболочки и подслизистой основы. Они содержат тонкостенные геморроидальные вены. В результате варикозного расширения этих вен и их выпячивания в просвет анального канала возникает заболевание - геморрой (рис. 13.36).

Рис. 13.36. Строение стенки прямой кишки: 1 - многослойный плоский ороговевающий эпителий; 2 - собственная пластинка слизистой оболочки, переходящая в подслизистую основу; 3 - геморроидальные вены; черно-белая микрофотография, окраска препарата гематоксилином и эозином (увеличение малое) (по П.И. Галаховой, 2011)
Мышечная оболочка содержит внутренний (циркулярный) и наружный (продольный) мышечные слои. За счет утолщения циркулярного слоя формируются сфинктеры прямой кишки. Наружный сфинктер образован поперечнополосатой мышечной тканью. Серозная оболочка покрывает прямую кишку лишь в верхнем отделе. В нижнем отделе кишки вместо серозной оболочки имеется соединительнотканная оболочка. Иннервация прямой кишки осуществляется симпатическими и парасимпатическими нервами. В прямой кишке хорошо развита чувствительная иннервация.
Поджелудочная железа состоит из экзокринной и эндокринной частей. Экзокринная часть выполняет внешнесекреторную функцию, связанную с выработкой панкреатического сока. Он содержит пищеварительные ферменты, трипсин, химотрипсин, карбоксилазу, липазу, амилазу и др. Панкреатический сок по выводным протокам поступает в двенадцатиперстную кишку, где его ферменты участвуют в расщеплении белков, жиров и углеводов. Эндокринная часть вырабатывает гормоны (инсулин, глюкагон, соматостатин, панкреатический полипептид и др.), регулирующие углеводный, жировой и белковый обмен веществ в организме.
Развитие. Энтодермальный зачаток железы появляется в конце 3-й недели эмбриогенеза. Вначале образуются дорсальное и вентральное выпячивания стенки туловищной кишки, которые вскоре срастаются в одну закладку органа. На 3-м месяце эмбриогенеза энтодермальный материал подразделяется на экзокринную и эндокринную части железы. Из эпителиальных разрастаний зачатка железы сначала образуется система выводных протоков, а затем - концевые секреторные отделы - панкреатические ацинусы. Последними из стволовых клеток терминальных участков выводных протоков развиваются эндокринные элементы поджелудочной железы - клетки островков Лангерганса. Гистогенез как экзокринного (ацинарного), так и эндокринного (инсулярного) эпителиев происходит в условиях взаимодействия этих тканей с мезенхимой. В паренхиме железы развиваются многочисленные кровеносные капилляры. К моменту рождения обе части поджелудочной железы приобретают дифференцированное строение. Однако и в постнатальном периоде происходят процессы дальнейшего структурно-функционального усложнения этого органа.
Строение. В железе различают головку, тело и хвост. Посредством протоков поджелудочная железа сообщается с двенадцатиперстной кишкой. Поджелудочная железа состоит из эпителиальной паренхимы и соединительнотканной стромы. Паренхима подразделена на дольки, между которыми находятся прослойки рыхлой соединительной ткани, кровеносные сосуды, нервы.
Экзокринная часть. Это сложная альвеолярно-трубчатая железа, имеющая дольчатое строение. Основную ее массу образуют структурно-функциональные единицы - панкреатические ацинусы, отделенные друг от друга прослойками рыхлой соединительной ткани. Ацинус состоит в основном из экзокринных панкреатоцитов, имеющих форму усеченного конуса и располагающихся на базальной мембране. Базальные части этих клеток широкие, апикальные - суженные. Располагаясь в один ряд, 8-12 панкреатоцитов, а также несколько клеток вставочного отдела формируют панкреатический ацинус, имеющий вид округлого или овального образования. В центре ацинуса находится небольшой просвет (рис. 13.37). На поверхности панкреатоцитов, обращенной в просвет, имеются короткие микроворсинки. Боковые поверхности рядом лежащих клеток в апикальной их части соединены при помощи плотных контактов и десмосом. Базальная часть панкреатоцитов окрашивается базофильно.
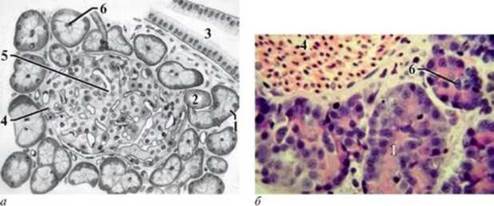
Рис. 13.37. Строение экзо- и эндокринного отделов поджелудочной железы: а - схема; б - микрофотография, окраска гематоксилином и эозином (увеличение среднее): 1 - ацинус; 2 - внутридольковый выводной проток; 3 - междольковый выводной проток; 4 - островок Лангерганса; 5 - кровеносный капилляр; 6 - центроацинозные клетки
Здесь расположена хорошо развитая гранулярная эндоплазматическая сеть, в которой синтезируются ферменты панкреатического сока.
Имеются также многочисленные митохондрии. Эту часть клетки называют гомогенной зоной. Апикальная часть панкреатоцитов окрашивается оксифильно. В этой части клеток в форме зимогена накапливаются синтезированные в клетке пищеварительные ферменты - трипсиноген, химотрипсиноген, прокарбоксипептидазы и др. Округлое ядро располагается обычно в средней части панкреатоцита (рис. 13.38).
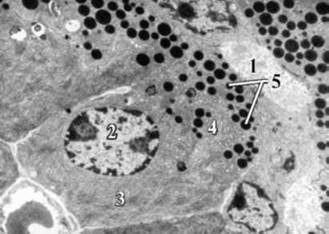
Рис. 13.38. Строение экзокринного панкреатоцита: 1 - просвет ацинуса; 2 - ядро; 3 - гранулярная эндоплазматическая сеть; 4 - комплекс Гольджи; 5 - секреторные гранулы; электронная микрофотография (увеличение 6000)
Структура клеток подвергается изменениям в различные фазы секреторного цикла. При голодании количество гранул в цитоплазме увеличивается. Через несколько минут после приема пищи отмечается интенсивный выход секреторных гранул из клеток. Выделение секрета происходит путем мерокринной секреции.
В состав ацинуса, кроме секреторного, входит и вставочный отдел - в большинстве случаев часть клеток вставочного протока как бы вдвинута внутрь ацинуса. При этом на срезе в центре ацинуса видны мелкие клетки, образующие стенку вставочного отдела. Их называют центроацинозными клетками (см. рис. 13.37). Форма их неправильная, уплощенная. Узкий слой цитоплазмы окружает овальное ядро. На поверхности клеток, обращенной в просвет ацинуса, образуются немногочисленные микроворсинки. Вставочные отделы переходят в межацинозные протоки, выстланные однослойным кубическим эпителием. Соединяясь вместе, межацинозные протоки образуют внутридольковые протоки, переходящие в междольковые. Последние впадают в общий выводной проток поджелудочной железы. Он открывается в двенадцатиперстную кишку. Стенка его выстлана однослойным столбчатым эпителием (см. рис. 13.37). В устье протока имеется гладкомышечный сфинктер. По ходу эпителиальной выстилки протоков поджелудочной железы встречаются слизистые бокаловидные экзокриноциты и эндокриноциты. Последние вырабатывают гормоны - холецистокинин и панкреозимин, которые стимулируют продукцию пищеварительных ферментов экзокринной частью поджелудочной железы, увеличивают секрецию желчи, сокращают мышечную ткань желчного пузыря, возбуждают моторику кишки и т.д.
Эндокринная часть. Островки состоят из эпителиальных клеток - эндо-криноцитов (см. рис. 13.37). Величина островков, их форма и число входящих в состав клеток очень различны. Общее количество островков в поджелудочной железе достигает 1-2 млн. Средний размер островка 0,1-0,3 мм. Общий объем эндокринной части составляет около 3% всего объема железы. Островки пронизаны кровеносными капиллярами, окруженными перикапиллярным пространством. Эндотелий капилляров имеет фенестры, облегчающие поступление гормонов от эндокриноцитов в кровь через перикапиллярное пространство. В островковом эпителии различают пять видов эндокриноцитов: А-, В-, D-, ВИП- и РР-клетки.
А-клетки (глюкагоноциты) - это крупные округлые клетки с крупным ядром и цитоплазмой, содержащей ацидофильные гранулы. Клетки располагаются по периферии островка. Большую часть цитоплазмы занимают секреторные гранулы. В состав этих гранул входит гормон глюкагон, расщепляющий гликоген и повышающий содержание сахара в крови. А-клетки составляют около 20-25% всех клеток островка.
В-клетки (инсулоциты) составляют основную массу клеток (70-75% общего числа клеток островка), имеют кубическую или призматическую форму. В базофильной цитоплазме располагаются крупное темное, богатое гетерохроматином ядро и осмиофильные гранулы, содержащие гормон инсулин. Инсулин регулирует синтез гликогена из глюкозы. При недостатке продукции инсулина глюкоза не превращается в гликоген, содержание ее в крови повышается и создаются условия для развития заболевания, называемого сахарным диабетом.
D-клетки (дендритические инсулоциты) составляют 5-10% среди всех островковых клеток. Форма их иногда звездчатая с отростками. В цитоплазме определяются гранулы средних размеров и плотности. В гранулах накапливается гормон соматостатин. Он тормозит секрецию инсулина и глюкагона, снижает продукцию ряда гормонов желудочно-кишечного тракта - гастрина, секретина, энтероглюкагона, холецистокинина и др., подавляет секрецию соматотропного гормона в гипофизе.
ВИП-клетки (аргирофильные клетки) встречаются в островках в небольшом количестве. В их цитоплазме выявляются плотные аргирофильные гранулы, содержащие вазоактивный интестинальный полипептид. Он расширяет сосуды, снижает кровяное давление, угнетает секрецию ионов водорода и хлора в желудке, стимулирует выделение глюкагона и инсулина.
РР-клетки - полигональной формы эндокриноциты, расположенные преимущественно по периферии островка. Они составляют 2-5% общего числа клеток островка. В цитоплазме РР-клеток выявляются мелкие гранулы, содержащие панкреатический полипептид. Основная роль панкреатического полипептида в организме - регуляция экзокринной секреции в поджелудочной железе и желчи в печени. Таков клеточный состав островкового эпителия, представляющего собой мозаику дивергентно развивающихся клеточных дифферонов из стволовой клетки.
В дольках поджелудочной железы встречаются еще ацинозно-инсулярные клетки, в цитоплазме которых одновременно содержатся гранулы, характерные как для ацинозных, так и для островковых клеток.
Ткани поджелудочной железы иннервируются блуждающим и симпатическим нервами. В интрамуральных вегетативных ганглиях находятся холинергические и пептидергические нейроны, волокна которых заканчиваются на клетках ацинусов и островков. Между нервными клетками ганглиев и островковыми клетками устанавливается тесная связь с образованием нейроинсулярных комплексов.
Регенерация. В эмбриогенезе островки растут благодаря пролиферации клеток-предшественниц и их дивергентной дифференцировке в соответствующие клеточные диффероны. У взрослых физиологическая регенерация экзокринных панкреатоцитов и островковых клеток происходит в основном путем внутриклеточного обновления органелл. Митотическая активность клеток в связи с высокой специализацией низкая. После повреждения или резекции части органа наблюдается некоторое повышение уровня пролиферативной активности клеток ацинусов, протоков и островков, последующее образование новых ацинусов. Однако ведущей формой регенерации экзокринной части железы является регенерационная гипертрофия. Восстановительные процессы в эндокринной части железы происходят за счет пролиферативной активности инсулоцитов и клеток эпителия протоков путем ацино-инсулярной трансформации.
Печень
Печень - самая крупная железа человека, ее масса составляет около 1,5 кг. Она выполняет многообразные функции и является жизненно важным органом. Чрезвычайно важными для поддержания жизнеспособности организма являются метаболические функции печени, в связи с чем ее называют биохимической лабораторией организма. В печени образуется желчь, необходимая для всасывания жиров и стимуляции перистальтики кишечника. В сутки выделяется около 1 л желчи. Печень является органом, играющим роль депо крови. В ней может депонироваться до 20% всей массы крови. В эмбриогенезе печень выполняет кроветворную функцию.
Развитие. Зачаток печени возникает в конце 3 -й недели эмбриогенеза из эн-тодермальной выстилки вентральной стенки средней кишки. Выпячивание этой стенки разрастается, образуя эпителиальные тяжи в мезенхиме брыжейки. Позднее тяжи подразделяются на краниальный и каудальный отделы, из которых соответственно формируются печень и желчный пузырь с протоками. В гистогенезе происходит гетерохронная дивергентная дифференцировка печеночных эпителиоцитов (гепатоцитов) и эпителиоцитов желчных проточков (холангиоцитов). Начиная со второй половины эмбриогенеза, в печени формируются структурно-функциональные единицы - печеночные дольки. Образование долек - это результат сложных взаимодействий между эпителием и внутрипеченочной соединительной тканью с развивающимися синусоидными кровеносными капиллярами.
Строение. В печени различают эпителиальную железистую паренхиму и соединительнотканную строму. Структурно-функциональными единицами печени являются печеночные дольки числом около 500 тыс. Печеночные дольки имеют форму шестигранных пирамид с диаметром до 1,5 мм и несколько большей высотой, в центре которых находится центральная вена (рис. 13.39). Формирование структуры дольки и гистофизиология эпителиальной железистой ткани печени тесно взаимосвязаны с развитием кровеносной системы. В разных частях дольки клетки печени (гепатоциты) оказываются в различных условиях обеспечения кислородом, что отражается на их строении, поэтому в дольке выделяются центральная, периферическая и находящаяся между ними промежуточная зоны. Особенностью кровоснабжения печеночной дольки является то, что отходящие от вокругдольковой артерии и вены внутридольковые артерия и вена сливаются и далее смешанная кровь по внутридольковым гемокапиллярам направляется к центральной вене. Внутридольковые гемокапилляры имеют диаметр до 30 мкм и относятся к синусоидному типу капилляров. Таким образом, по внутридольковым капиллярам смешанная кровь (венозная - из системы воротной вены и артериальная - из печеночной артерии) течет от периферии к центру дольки (рис. 13.40).
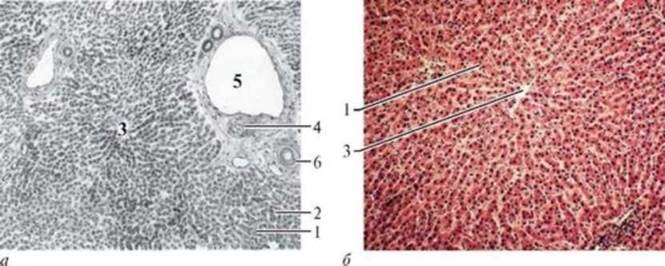
Рис. 13.39. Строение печени: а - схема; б - микрофотография, окраска гематоксилином и эозином (увеличение малое): 1 - печеночные балки; 2 - внутридольковый кровеносный капилляр; 3 - центральная вена; 4 - междольковая артерия; 5 - междольковая вена; 6 - междольковый желчный проток

Рис. 13.40. Схема реконструкция сосудистой системы дольки печени: 1 - междольковый сосуд; 2 - вокругдольковый сосуд; 3 - внутридольковая капиллярная сеть; 4 - центральная вена
По этой причине клетки периферической зоны дольки оказываются в более благоприятных условиях снабжения кислородом, чем таковые в центре дольки (см. рис. 13.40).
По междольковой соединительной ткани, в норме слабо развитой у человека, проходят кровеносные и лимфатические сосуды, а также выводные желчные протоки. Как правило, междольковая артерия, междольковая вена и междольковый выводной проток идут вместе, образуя так называемые триады печени. Лимфатические сосуды проходят в некотором отдалении от триад.
Между капиллярами внутридольковой сети располагается эпителиальная (железистая) паренхима печени. Структурно-функциональной единицей железистой паренхимы являются гепатоциты. Последние составляют 60% всех клеток печени. С деятельностью гепатоцитов связано выполнение большей части функций, свойственных печени. При этом нет строгой специализации между гепатоцитами, и потому одни и те же гепатоциты вырабатывают как экзокринный секрет (желчь), так и по типу эндокринной секреции многочисленные вещества, поступающие в кровоток.
Гепатоциты имеют неправильную многоугольную форму. Средний диаметр клеток - 20-25 мкм. Различают апикальную (билиарную) поверхность гепатоцита, обращенную в просвет желчного капилляра, и базальную (ва-скулярную) поверхность - в сторону синусоидного капилляра. В центральной части клетки лежат одно-два округлых ядра. Часть из них представляет собой крупные, полиплоидные ядра, причем число таких ядер увеличивается с возрастом и может достигать в старости 80%. В
цитоплазме хорошо развита гранулярная эндоплазматическая сеть, участвующая в синтезе белков крови. Метаболизм углеводов связан с гладкой эндоплазматической сетью, которая рассеяна в цитоплазме в виде трубочек и пузырьков. Вблизи этих элементов гладкой эндоплазматической сети выявляются гранулы гликогена. Цитоплазма гепатоцитов изобилует митохондриями, число которых в одной клетке превышает 1000. Комплекс Гольджи хорошо развит. Встречаются пероксисомы, лизосомы, а также различные включения (жировые, пигментные и др.). Количество включений в гепатоцитах находится в связи с фазами пищеварения. После приема пищи резко возрастает количество гликогена, увеличивается число липидных включений.
Гепатоциты обычно располагаются в виде двух тесно прилегающих друг к другу рядов, образуя при этом печеночные балки (рис. 13.41).
Между апикальными (билиарными) поверхностями двух гепатоцитов образуется щелевидное пространство с диаметром 0,5- 1 мкм. Эти межклеточные узкие щели называют желчными капиллярами. Последние начинаются слепо и в своей начальной части собственной стенки не имеют. Однако ближе к периферии дольки формируются канальцы Геринга - желчные проточки, стенка которых представлена как гепатоцитами, так и эпителиоцитами проточков (холангиоцитами). По мере увеличения калибра проточка его стенка становится сплошной, выстланной однослойным эпителием, в составе которого располагаются малодифференцированные камбиальные холангиоциты. По проточкам желчь попадает в междольковые желчные протоки, выстланные однослойным кубическим эпителием. При обычных методах окраски желчные капилляры не выявляются, но обнаруживаются при импрегнации солями серебра, гистохимической реакцией на щелочную фосфатазу и другими методами.

Рис. 13.41. Строение печени: а - схема; б - микрофотография, окраска гематоксилином и пикриновой кислотой (увеличение большое): 1 - гепатоциты печеночной балки; 2 - просвет гемокапилляра; 3 - звездчатые макрофаги
Таким образом, вырабатывая желчь, печень функционирует как экзокринная железа. Вместе с тем она выделяет в кровь такие вещества, как глюкоза, мочевина, белковые фракции и другие, что характеризует печень как эндокринный орган. Из гепатоцитов эти вещества поступают через базальную (синусоидную) поверхность клетки. Между гепатоцитом и синусоидным капилляром располагается перисинусоидное пространство Диссе, в которое гепатоцит выделяет белки, глюкозу, мочевину и другие вещества в процессе осуществления метаболических функций.
В печеночной дольке существуют две системы, не связанные между собой и действующие по принципу противотока: желчеотводящая, по которой желчь идет от центра на периферию дольки, и кровеносная, по которой кровь движется от периферии к центру дольки. Между желчными и кровеносными капиллярами нет непосредственного соединения, и в условиях нормы желчь не поступает в кровоток. Просвет желчного капилляра является замкнутым благодаря наличию между образующими его соседними гепатоцитами межклеточных контактов нескольких типов - плотных, щелевых и десмосом. В просвет желчного капилляра выступают микроворсинки, образованные на билиарной поверхности гепатоцитов.
Базальная поверхность гепатоцитов обращена в сторону перисинусоидного пространства. В это пространство выступают также многочисленные микроворсинки, что увеличивает активную поверхность гепатоцитов. Само перисинусоидное пространство представляет собой узкую щель (шириной 0,2-1 мкм).
Если одну стенку его образует базальная поверхность гепатоцитов, то другую - стенка синусоидного капилляра. Стенка внутридольковых синусоидов выстлана эндотелием, в котором, кроме плоских и тонких эндотелиоцитов, имеются многочисленные вкрапления более крупных звездчатых клеток. Последние известны под названием звездчатые макрофаги, или клетки Купфера. Это производные моноцитов крови и они представляют собой печеночные макрофаги. В цитоплазме этих клеток много пиноцитозных и фагоцитозных пузырьков, плотных телец (вторичных лизосом). Звездчатые макрофаги способны поглощать из крови циркулирующие вещества, накапливать их в цитоплазме, захватывать и переваривать бактерии, обломки эритроцитов. Они способны к амебоидному движению и могут выходить в просвет синусоидов. Набухая, эти клетки выполняют роль сфинктеров синусоидных капилляров. Эндотелиоциты соединяются в пласт при помощи плотных межклеточных контактов. В выстилке синусоидных капилляров обнаружено наличие мелких отверстий, посредством которых сообщаются между собой просвет синусоидов и перисинусоидное пространство. Поры имеют диаметр около 100 нм. Участки истонченной цитоплазмы эндотелиоцитов, где концентрируются эти отверстия, называют ситовидными пластинками. Они играют роль фильтра. В стенке внутридольковых синусоидных капилляров на большом протяжении отсутствует базальная мембрана, что облегчает проникновение веществ из крови в перисинусоидное пространство и в обратном направлении. В перисинусоидном пространстве находятся жидкость, богатая белками, а также аргирофильные фибриллы, единичные фибробласты, отростки звездчатых клеток и др. В нем обнаружены особые мелкие клетки - перисинусоидные клетки, или клетки Ито. Они обладают способностью накапливать в своей цитоплазме липиды и депонировать жирорастворимые витамины. Эти клетки называют также жиронакапливающими клетками. Их рассматривают как особый тип соединительнотканных интерстициальных клеток. С функциями клеток связываются синтез и секреция белков коллагена и участие в развитии цирроза печени. В перисинусоидном пространстве располагаются pit-клетки, относящиеся к большим гранулярным лимфоцитам (печеночные натуральные киллеры), которые выделяют вещества, стимулирующие пролиферацию гепатоцитов, участвуют в защитной функции.
Эндотелий синусоидных капилляров, звездчатые макрофаги, структуры в перисинусоидном пространстве составляют вместе гепатогематический барьер, или гистион, через который происходит обмен веществ между железистым эпителием печени и кровью.
Для печени характерен суточный ритм: синтез и выделение желчи интенсивнее происходят днем, а гликоген в большом количестве накапливается ночью. Больше гликогена образуется в клетках, расположенных около центральной вены, а желчи - в гепатоцитах на периферии дольки.
Наряду с классическими представлениями о строении печеночной дольки имеются и другие трактовки ее гистоархитектуры. Так, согласно одной из гипотез, элементами дольки являются не печеночные балки, а пластины, состоящие из одного слоя гепатоцитов. Печеночные пластины отгораживают, как стенками, цилиндрические синусоидные пространства (лакуны), по которым протекает кровь. Описаны также так называемые портальные дольки и печеночные ацинусы. Центром портальной дольки признается триада, а периферическими ориентирами являются центральные вены трех смежных долек. В целом портальная долька имеет форму треугольника. В ее пределах кровь течет по направлению от центра на периферию. Печеночный ацинус образуют сегменты двух соседних классических долек, расположенных между близлежащими центральными венами. Ацинус имеет ромбовидную форму. У острых углов ромба находятся центральные вены, а у тупого - триада.
Эти представления о структурно-функциональных единицах печени помогают понять особенности поражений разных отделов печеночной дольки в условиях патологии.
Желчевыводящие пути
Желчевыводящие пути представлены внутрипеченочными и внепеченочными желчными протоками. Первые из них - это междольковые желчные протоки, в которые желчь поступает из желчных капилляров. Стенка междольковых желчных протоков состоит из однослойного кубического или столбчатого (в более крупных протоках) эпителия и тонкого слоя рыхлой соединительной ткани. Внепеченочные желчевыводящие пути включают печеночные, пузырный и общий желчный протоки. Стенка их состоит из слизистой, мышечной и наружной оболочек. Просвет протоков выстилает столбчатый эпителий, в котором, наряду с каемчатыми столбчатыми эпителиоцитами, имеются бокаловидные экзокриноциты и единичные эндокриноциты. В мышечной оболочке при впадении протоков в желчный пузырь и двенадцатиперстную кишку находятся сфинктеры, регулирующие поступление желчи в эти органы.
Реактивность и регенерация печени. Ткани печени отличаются высокой чувствительностью к действию повреждающих факторов. Действие алкоголя, отравляющих веществ, ионизирующей радиации, комбинированных повреждений приводит к резкому нарушению кровообращения в печени, связанному с его особенностями в этом органе. Нарушается интеграция гепатоцитов в составе печеночных балок, в клетках снижается количество гликогена, изменяется активность окислительно-восстановительных ферментов, подавляется фагоцитарная активность печеночных макрофагов. На месте гибнущих гепатоцитов разрастается рыхлая соединительная ткань. Эпителий печени проявляет способность к физиологической и репаративной регенерации. В эксперименте на животных при удалении до 70% массы печени через 2 нед происходит полное восстановление утраченной массы печени. Этот феномен наблюдается каждый раз при многократных резекциях, проводимых с интервалом около месяца. Однако высокая регенерационная способность печени не характерна для человека. В целом гепатоциты и холангиоциты относятся к растущей клеточной популяции.
Желчный пузырь
Стенка желчного пузыря состоит из слизистой, мышечной и адвентициальной оболочек (рис. 13.42).

Рис. 13.42. Строение стенки желчного пузыря: а - схема; б - микрофотография, окраска гематоксилином и эозином (увеличение малое): 1 - поверхностный эпителий; 2 - рыхлая соединительная ткань собственной пластинки слизистой оболочки; 3 - мышечная оболочка; 4 - серозная оболочка
Слизистая оболочка образует многочисленные складки и крипты. Столбчатый поверхностный эпителий обладает способностью всасывать воду и соли из желчи, что приводит к повышению концентрации желчного пигмента, холестерина и солей желчных кислот в пузырной желчи. В составе эпителия присутствуют поверхностные эпителиоциты, бокаловидные экзокриноциты, продуцирующие слизь, и базальные клетки (камбиальные). В собственной соединительнотканной пластинке слизистой оболочки располагаются жировые, плазматические и тучные клетки.
Мышечная оболочка желчного пузыря состоит из преимущественно циркулярно расположенных гладких миоцитов. Сокращение мышечной ткани регулируется гормоном холецистокинином, который вырабатывается эндокриноцитами кишечного эпителия. Желчь поступает в кишечник порциями. Адвентициальная оболочка желчного пузыря представлена волокнистой соединительной тканью. Со стороны брюшной полости стенку желчного пузыря покрывает серозная оболочка.
Возрастные изменения органов среднего отдела пищеварительного тракта.
Желудок у новорожденного имеет все отделы. Слизистая оболочка толще, чем у взрослого, ее дифференцировка не завершена, особенно в пилорическом отделе. Главные клетки желез желудка вырабатывают пепсин и сычужный фермент; париетальные клетки, несмотря на морфологическую зрелость, не обеспечивают кислую реакцию желудочного сока. Подслизистая основа тонкая, богата сосудами, мышечная пластинка представлена тонким слоем гладких миоцитов. Мышечная оболочка имеет три слоя, умеренно развита за исключением пилорического отдела, где хорошо сформирован мышечный жом. Кардиальный сфинктер недоразвит, что не препятствует срыгиванию. Развитие желудка в основном завершается к 10-12 годам, хотя его слизистая оболочка полностью формируется только в период полового созревания.
У новорожденного отношение длины толстой кишки к длине тонкой 1:6 (у взрослых - 1:4). Складки слизистой оболочки на всем протяжении кишечника развиты слабо. Слизистая оболочка тонкая, хорошо кровоснабжена, характеризуется высокой степенью проницаемости, с чем связано практически беспрепятственное поступление в кровоток микробов, токсинов и продуктов неполного переваривания пищи. Кишечные ворсинки слизистой оболочки тонкой кишки плохо развиты, крипты толстой кишки широкие и неглубокие, в эпителии как ворсинок, так и крипт много бокаловидных клеток. Подслизистые железы двенадцатиперстной кишки имеют трубчатые концевые отделы и многочисленные клетки Панета. Лимфоидный аппарат на всем протяжении кишечника у новорожденного развит слабо. Мышечная оболочка на всем протяжении кишечника тонкая. Для интрамуральных нервных сплетений всех отделов кишечника характерно присутствие нейробластов и нейронов, не закончивших дифференцировку. Постнатальное развитие кишечника завершается к периоду полового созревания. Инволютивные изменения при старении заключаются в уменьшении толщины слизистой оболочки всего кишечника, сглаживании рельефа и частоты расположения кишечных ворсинок тонкой кишки, в снижении секреторной активности железистых клеток, замедлении скорости регенерации эпителия. Постепенно исчезают лимфоидные фолликулы, замещаясь диффузно распределенными лимфоцитами в слизистой оболочке и подслизистой основе. Нервная система кишечника подвергается дегенеративным изменениям. В толстой кишке часто возникают дивертикулы - пальцевидные инвагинации внутрь слизистой оболочки, в которых застаивается содержимое кишки и нередко возникает воспаление (дивертикулит).
Поджелудочная железа у новорожденного не имеет отчетливо выраженного дольчатого строения; в ее составе присутствует относительно большое количество соединительной ткани. Слабо развиты внутридольковые и междольковые выводные протоки; концевые отделы мелкие и относительно немногочисленные. Уровень секреторной активности железы невысок, базофильная и ацидофильная зоны ацинусов плохо выражены. Рост поджелудочной железы в постнатальном периоде связан с образованием новых протоков и концевых отделов, увеличением числа железистых клеток. Изменения железы с возрастом характеризуются деструктивными признаками: сужением и облитерацией сосудов, кистозными изменениями в паренхиме или, напротив, уменьшением величины концевых отделов, снижением активности выработки и секреции панкреатического сока.
В эндокринной части железы у новорожденных клетки сформированных островков характеризуются признаками высокой функциональной активности. В первые недели и даже месяцы жизни происходит новообразование панкреатических островков из эпителия мелких внутридольковых протоков и центральных клеток. С возрастом в поджелудочной железе постепенно уменьшается количество островков. В них наблюдаются закономерные возрастные изменения клеточных взаимоотношений, заключающиеся в быстрой смене после рождения преобладания А-клеток над В-клетками на преобладание В-клеток над А-клетками у взрослых. Затем происходит постепенное увеличение количества А-клеток, которое наряду с одновременным, хотя и незначительным, уменьшением числа В- клеток приводит нередко в пожилом и особенно старческом возрасте вновь к преобладанию А-клеток над В-клетками.
Печень у новорожденного не достигает окончательного развития, хотя ее относительная масса в 2 раза больше, чем у взрослого, печеночные дольки плохо выражены. Сохраняются «следы» миелоидного кроветворения, характерного для периода эмбриогенеза, в виде единичных кроветворных клеток (в печени недоношенных новорожденных присутствуют более крупные скопления кроветворных клеток). К 8-10 годам жизни оформляется четкая дольчатая структура печени. В процессе старения дегенеративные изменения в печени не столь отчетливо выражены и, хотя митотическая активность гепатоцитов постепенно угасает, это компенсируется увеличением размеров ядер и появлением полиплоидных гепатоцитов. С возрастом в гепатоцитах умеренно снижается запас гликогена, снижается интенсивность внутрипеченочного кровотока, замедляется выведение желчи. Возрастные изменения печени характеризуются понижением метаболической и пролиферативной активности гепатоцитов, накоплением в их цитоплазме липофусцина и дистрофическими явлениями. Между печеночными дольками разрастается соединительная ткань. Это избыточное разрастание приводит к циррозу (от греч. kirros - рыжий цвет) печени или ее сморщиванию.
Желчный пузырь у новорожденного окончательно не сформирован, имеет веретенообразную форму. Хорошо развит циркулярный слой мышечной оболочки его стенки. При старении желчный пузырь утрачивает тонус и эффективность выделения желчи в кишечник снижается.
Контрольные вопросы
1. Источники развития органов пищеварительного тракта.
2. Общий план строения пищеварительной трубки.
3. Морфофункциональные единицы желез пищеварительного тракта.
4. Реактивность и регенерация печени и поджелудочной железы.
5. Возрастные изменения органов пищеварительного тракта.